Bunyaviricetes

| Domaine | Riboviria |
|---|---|
| Règne | Orthornavirae |
| Embranchement | Negarnaviricota |
| Sous-embr. | Polyploviricotina |
Ordres de rang inférieur
- Elliovirales
- Hareavirales
Les Bunyaviricetes sont une classe de virus à ARN monocaténaire négatif segmenté, possédant principalement un génome tripartite. Ces virus infectent les arthropodes, les plantes, les protozoaires et les vertébrés[1]. Le nom Bunyaviricetes dérive de Bunyamwera[2], où le virus de Bunyamwera a été découvert pour la première fois[3].
Les bunyavirus appartiennent au cinquième groupe de la classification de Baltimore, qui regroupe les virus à génome ARN monocaténaire de polarité négative. Ils possèdent un virion sphérique enveloppé. Bien que généralement présents chez les arthropodes ou les rongeurs, certains virus de cette classe infectent occasionnellement l'humain. Certains infectent également les plantes[4]. De plus, il existe un groupe de bunyavirus dont la réplication est restreinte aux arthropodesucia[5].
La majorité des bunyavirus sont transmis par des vecteurs. À l'exception des hantavirus et des arénavirus, tous les virus de la classe des Bunyaviricetes sont transmis par des arthropodes (moustiques, tiques ou phlébotomes). Les hantavirus se transmettent par contact avec les excréments de rongeurs. L'incidence de l'infection est étroitement liée à l'activité du vecteur ; par exemple, les virus transmis par les moustiques sont plus fréquents en été[4].
Les infections humaines par certains Bunyaviricetes, comme le virus de la fièvre hémorragique de Crimée-Congo, sont associées à des taux élevés de morbidité et de mortalité ; par conséquent, la manipulation de ces virus est effectuée dans des laboratoires de biosécurité de niveau 4. Ils sont également responsables du syndrome de fièvre sévère avec thrombocytopénie[6].
Les hantavirus constituent un autre membre important de la classe des Bunyaviricetes sur le plan médical. On les trouve dans le monde entier et ils sont relativement fréquents en Corée, en Scandinavie (y compris en Finlande), en Russie, dans l'ouest de l'Amérique du Nord et dans certaines régions d'Amérique du Sud. Les infections à hantavirus sont associées à une forte fièvre, un œdème pulmonaire et une insuffisance respiratoire. Le taux de mortalité varie considérablement selon la forme, pouvant atteindre 50 % pour les hantavirus du Nouveau Monde (Amériques), 15 % pour les hantavirus de l'Ancien Monde (Asie et Europe) et seulement 0,1 % pour le virus de Puumala (principalement en Scandinavie)[7]. La réaction des anticorps joue un rôle important dans la diminution des niveaux de virémie.
Virologie
Structure
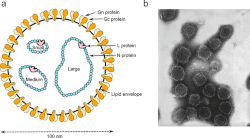
La morphologie des bunyavirus est assez similaire à celle de la famille des Paramyxoviridae ; les bunyavirus forment des virions sphériques enveloppés d’un diamètre de 80 à 120 nm. Ces virus ne contiennent pas de protéines de matrice[8]. En revanche, les glycoprotéines de surface virales, qui forment une couche continue à la surface du virion, joueraient un rôle dans la formation de nouveaux virions par bourgeonnement à partir d’une membrane cellulaire[9].
Génome
Les bunyavirus possèdent un génome bi- ou tripartite constitué d’un grand segment d’ARN (L) et d'un ou plusieurs petits segments, ou d’un grand (L), d’un moyen (M) et d’un petit (S). Ces segments d’ARN sont monocaténaires et s’organisent en hélice au sein du virion. De plus, ils présentent une structure pseudocirculaire[réf. souhaitée] due à la complémentarité de leurs extrémités. Le segment L code l'ARN-polymérase ARN-dépendante, essentielle à la réplication de l’ARN viral et à la synthèse de l'ARNm. Le segment M code pour les glycoprotéines virales, qui font saillie à la surface du virus et permettent à celui-ci de se fixer à la cellule hôte et d'y pénétrer. Le segment S code pour la protéine de la nucléocapside (N)[10].
La plupart des bunyavirus possèdent des segments L et M de polarité négative. Le segment S du genre Phlebovirus[11], et les segments M et S du genre Orthotospovirus sont ambisens[12]. Ambisens signifie que certains gènes du brin d'ARN sont de polarité négative et d'autres de polarité positive. Le segment S ambisens code la nucléoprotéine virale (N) en polarité négative et une protéine non structurale (NS) en polarité positive. Le segment M ambisens code la glycoprotéine (GP) en polarité négative et une protéine non structurale (NSm) en polarité positive[12].
La taille totale du génome varie de 10,5 à 22,7 kpb[13].
Cycle de vie
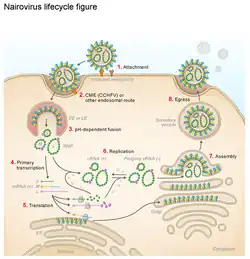
Le génome ambisens nécessite deux cycles de transcription. Dans un premier temps, l'ARN de polarité négative est transcrit en ARNm et en un intermédiaire réplicatif complet. À partir de cet intermédiaire, un ARNm sous-génomique codant la petite protéine non structurale est produit, tandis que la polymérase produite après le premier cycle de transcription peut alors répliquer l'ARN complet pour produire des génomes viraux.[réf. souhaitée]
Les bunyavirus se répliquent dans le cytoplasme, tandis que les protéines virales transitent par le réticulum endoplasmique et l'appareil de Golgi. Les virions matures bourgeonnent de l'appareil de Golgi dans des vésicules qui sont transportées à la surface cellulaire.[réf. souhaitée]
Transmission
Les bunyavirus infectent les arthropodes, les plantes, les protozoaires et les vertébrés[1]. Les plantes peuvent héberger des bunyavirus appartenant aux familles des Tospoviridae et des Fimoviridae (par exemple, la tomate, le pois d'Angole, le melon, le blé, le framboisier, le gainier et le rosier). Certains membres de ces familles sont spécifiques aux insectes, comme les Phasmaviridae (en), initialement isolés chez des cécidomyies fantômes[14] et depuis identifiés chez divers insectes, notamment des papillons de nuit, des guêpes, des abeilles et des diptères.
Taxonomie
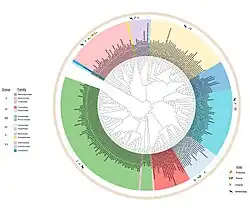
La classe des Bunyaviricetes comprend deux ordres qui regroupent 16 familles. Ces taxons sont listés ci-après[15] (les suffixes -virales et -viridae désignant respectivement un ordre et une famille) :
- Elliovirales
- Cruliviridae
- Fimoviridae
- Hantaviridae
- Peribunyaviridae
- Phasmaviridae
- Tospoviridae
- Tulasviridae
- Hareavirales
- Arenaviridae
- Discoviridae
- Konkoviridae
- Leishbuviridae
- Mypoviridae
- Nairoviridae
- Phenuiviridae
- Tosoviridae
- Wupedeviridae
Notes et références
- (en) Cet article est partiellement ou en totalité issu de l’article de Wikipédia en anglais intitulé « Bunyaviricetes » (voir la liste des auteurs).
- (en) Venura Herath, Gustavo Romay, Cesar D. Urrutia et Jeanmarie Verchot, « Family Level Phylogenies Reveal Relationships of Plant Viruses within the Order Bunyavirales », Viruses, vol. 12, no 9, , p. 1010 (PMID 32927652, PMCID 7551631, DOI 10.3390/v12091010
 )
- ↑ (en) « ICTV 9th Report (2011) Bunyaviridae », sur International Committee on Taxonomy of Viruses (ICTV) (consulté le ) : « Bunya: from Bunyamwera, place in Uganda, where type virus was isolated. »
- ↑ (en) K. C. Smithburn, A. J. Haddow et A. F. Mahaffy, « A Neurotropic Virus Isolated from Aedes Mosquitoes Caught in the Semliki Forest », The American Journal of Tropical Medicine and Hygiene, vol. s1–26, no 2, , p. 189–208 (ISSN 1476-1645, OCLC 677158400, PMID 21020339, DOI 10.4269/ajtmh.1946.s1-26.189)
- Plyusnin, A et Elliott, RM, Bunyaviridae: Molecular and Cellular Biology, Caister Academic Press, (ISBN 978-1-904455-90-5)
- ↑ (en) « Understanding the Mechanisms Underlying Host Restriction of Insect-Specific Viruses », Viruses, vol. 12, no 9, , p. 964 (PMID 32878245, PMCID 7552076, DOI 10.3390/v12090964 )
- ↑ Yu XJ, Liang MF, Zhang SY et al., « Fever with thrombocytopenia associated with a novel bunyavirus in China », N. Engl. J. Med., vol. 364, no 16, , p. 1523–32 (PMID 21410387, PMCID 3113718, DOI 10.1056/NEJMoa1010095)
- ↑ Walter Muranyi, Udo Bahr, Martin Zeier et Fokko J. van der Woude, « Hantavirus Infection », Journal of the American Society of Nephrology, vol. 16, no 12, , p. 3669–3679 (PMID 16267154, DOI 10.1681/ASN.2005050561 )
- ↑ (en) « Bunyaviridae – Negative Sense RNA Viruses – Negative Sense RNA Viruses (2011) », sur International Committee on Taxonomy of Viruses (ICTV) (consulté le )
- ↑ Huiskonen JT, Hepojoki J, Laurinmäki P, Vaheri A, Lankinen H, Butcher SJ, Grünewald K et al., « Electron cryotomography of Tula hantavirus suggests a unique assembly paradigm for enveloped viruses. », J Virol, vol. 84, no 10, , p. 4889–97 (PMID 20219926, PMCID 2863824, DOI 10.1128/JVI.00057-10)
- ↑ A. Ariza, S. J. Tanner, C. T. Walter, K. C. Dent, D. A. Shepherd, W. Wu, S. V. Matthews, J. A. Hiscox et T. J. Green, « Nucleocapsid protein structures from orthobunyaviruses reveal insight into ribonucleoprotein architecture and RNA polymerzation », Nucleic Acids Research, vol. 41, no 11, , p. 5912–5926 (ISSN 0305-1048, PMID 23595147, PMCID 3675483, DOI 10.1093/nar/gkt268)
- ↑ Richard M Elliott et Benjamin Brennan, « Emerging phleboviruses », Current Opinion in Virology, vol. 5, no 100, , p. 50–57 (PMID 24607799, PMCID 4031632, DOI 10.1016/j.coviro.2014.01.011)
- R. N. Lima, A. S. De Oliveira, M. O. Leastro, R. Blawid, T. Nagata, R. O. Resende et F. L. Melo, « The complete genome of the tospovirus Zucchini lethal chlorosis virus », Virology Journal, vol. 13, no 1, , p. 123 (PMID 27388209, PMCID 4936248, DOI 10.1186/s12985-016-0577-4 )
- ↑ « 00.011. Bunyaviridae » [archive du ], ICTVdB—The Universal Virus Database, version 4, (consulté le )
- ↑ MJ Ballinger, JA Bruenn, J Hay, D Czechowski et DJ Taylor, « Discovery and evolution of bunyavirids in arctic phantom midges and ancient bunyavirid-like sequences in insect genomes », J Virol, vol. 88, no 16, , p. 8783–94 (PMID 24850747, PMCID 4136290, DOI 10.1128/JVI.00531-14)
- ↑ « Virus Taxonomy: 2024 Release », International Committee on Taxonomy of Viruses (consulté le )
 Portail de la virologie