Récepteur des lymphocytes T
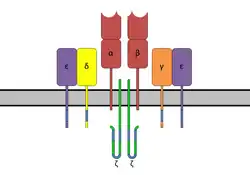
Le récepteur des lymphocytes T ou récepteur des cellules T (en anglais T cell receptor ou TCR) est un complexe moléculaire qui se trouve sur la membrane des lymphocytes T (ou cellules T). Ce récepteur membranaire constitue un paratope et est responsable de la reconnaissance des complexes CMH-peptide. Il s’agit d’un hétérodimère composé d’une chaîne alpha et d’une chaîne bêta dans 95 % des cellules T, les 5 % restant possédant un TCR gamma/delta. La liaison du TCR avec son épitope de prédilection entraîne l’activation du lymphocyte par le biais d’une série d'événements impliquant des enzymes, des co-récepteurs et des molécules spécialisées.
La formation du locus TCR est semblable au phénomène conduisant a la formation des récepteurs des cellules B et des anticorps. La chaîne alpha du TCR est générée par une recombinaison VJ, tandis que la chaîne bêta subit une recombinaison VDJ. De même, la chaîne gamma est issue d’une recombinaison VJ et la chaîne delta VDJ. Les zones de jonction entre les segments V, (D,) et J correspondent au domaine codant CDR3. La combinaison unique des segments VDJ ainsi que l’addition aléatoire de nucléotide pendant la recombinaison est la clef de la diversité des spécificités possibles pour les récepteurs des cellules T.
La région transmembranaire du récepteur des cellules T est composée d’acides aminés basiques, c’est-à-dire chargés positivement. Cette charge electrostatique permet au TCR de s’associer avec d’autres protéines comme le complexe CD3, qui est constitué de trois chaînes différentes (γ, δ et ε) et la chaîne ζ. Ces molécules « accessoires » ont une région transmembranaire chargée négativement, et sont nécessaires à la transduction de signaux à partir du TCR. La région cytoplasmique du TCR est très courte, rendant improbable sa participation dans la transmission du signal. L’assemblage de molécules CD3 et du TCR forme le complexe TCR.
Le signal transduit par le complexe TCR est augmenté par la liaison simultanée des complexes CMH-peptide par un co-récepteur spécifique. Les cellules portant un TCR capable de se lier à une molécule du CMH de classe II portent également la molécule CD4 ; celles qui lient uniquement le CMH de classe I portent la molécule CD8. Ces co-récepteurs renforcent et prolongent l’interaction entre le lymphocyte T et la cellule présentatrice d'antigène et participent aussi à la transduction du signal.
Introduction
Les lymphocytes T sont des médiateurs clés dans l’établissement d’une réponse immunitaire adaptative efficace à médiation cellulaire[1],[2]. Les lymphocytes T surveillent en permanence les tissus lymphoïdes et périphériques à la recherche d’antigènes, tels que des peptides ou des lipides, présentés par les molécules du complexe majeur d’histocompatibilité (CMH) d’autres cellules. Le développement normal des lymphocytes T dans le thymus comporte un point de contrôle majeur au cours duquel la signalisation du récepteur des lymphocytes T est impliquée. Les thymocytes portant des récepteur des lymphocytes T ayant une forte affinité pour les complexes CMH–peptide du soi subissent une apoptose (sélection négative), tandis que ceux portant des récepteur des lymphocytes T de faible affinité survivent et se différencient en lymphocytes T matures (sélection positive)[3]. Cela garantit que seuls les lymphocytes T tolérants au soi survivent, tout en éliminant les lymphocytes T auto-réactifs[4]. Ces lymphocytes T naïfs matures simple positifs quittent ensuite le thymus et gagnent les organes lymphoïdes périphériques, tels que la rate et les ganglions lymphatiques, où ils sont exposés à des peptides étrangers présentés par les molécules du complexe majeur d’histocompatibilité des cellules présentatrices d’antigènes , telles que les macrophages, les cellules dendritiques et les lymphocytes B, lors d’une infection pathogène[5]. Lors de l’engagement du récepteur des lymphocytes T avec le peptide antigénique, les lymphocytes T s’activent et subissent une expansion clonale et une différenciation afin d’exercer leurs fonctions effectrices, en raison d’une série complexe de changements moléculaires au niveau de la membrane plasmique, du cytoplasme et du noyau[6],[7].La signalisation des lymphocytes T est donc essentielle à leur développement, à leur activation et à la tolérance immunitaire. Une dérégulation de la signalisation du récepteur des lymphocytes T peut ainsi conduire à l’anergie ou à l’auto-immunité[8].
De manière générale, la transmission des signaux externes vers l’intérieur de la cellule se fait par la liaison d’un ligand au domaine extracellulaire du récepteur, entraînant l’agrégation du récepteur ou des changements conformationnels. Une fois cette étape réalisée, les tyrosine kinases protéiques phosphorylent divers résidus tyrosine présents dans la queue cytoplasmique du récepteur, qui servent de sites d’ancrage à différentes molécules de signalisation contenant des domaines spécifiques de reconnaissance des phosphotyrosines, tels que les domaines d’homologie SRC 2 et de liaison aux phosphotyrosines[6]. Cela déclenche des signaux biochimiques proximaux médiés par des enzymes effectrices clés, telles que des kinases, des phosphatases et des phospholipases, qui aboutissent à une signalisation distale par l’activation de nombreux facteurs de transcription nécessaires pour traduire ces événements en activation génique[9]. Toutefois, les signaux proximaux et distaux doivent être intégrés, et cette intégration est assurée par diverses protéines adaptatrices dont la fonction principale est de former des complexes multiprotéiques[10].
Les adaptateurs sont des protéines qui manquent généralement d’activité enzymatique intrinsèque et possèdent à la place de multiples domaines de liaison pour les phosphotyrosines, les régions riches en proline et les lipides, ainsi que des motifs de séquence impliqués dans la liaison à ces domaines[11],[12]. Les résidus tyrosine phosphorylés de diverses protéines adaptatrices servent de sites de liaison à de nombreuses enzymes effectrices essentielles et à d’autres protéines adaptatrices[6]. Elles se comportent ainsi comme des échafaudages, facilitant les interactions protéine–protéine qui contribuent à la formation de complexes multiprotéiques et, par conséquent, à l’intégration des cascades de signalisation nécessaires à une biologie efficace des lymphocytes T. En outre, les adaptateurs interagissent également avec d’autres adaptateurs présents dans les microdomaines de la membrane plasmique et jouent même des rôles importants dans la régulation du cytosquelette[6],[10],[13]. Les protéines adaptatrices spécifiques de l’hématopoïèse ont permis une meilleure compréhension de la signalisation des lymphocytes T.[13] Ces protéines adaptatrices peuvent réguler la transduction du signal de manière positive comme négative[10],[13].
Composants du complexe du récepteur des lymphocytes T
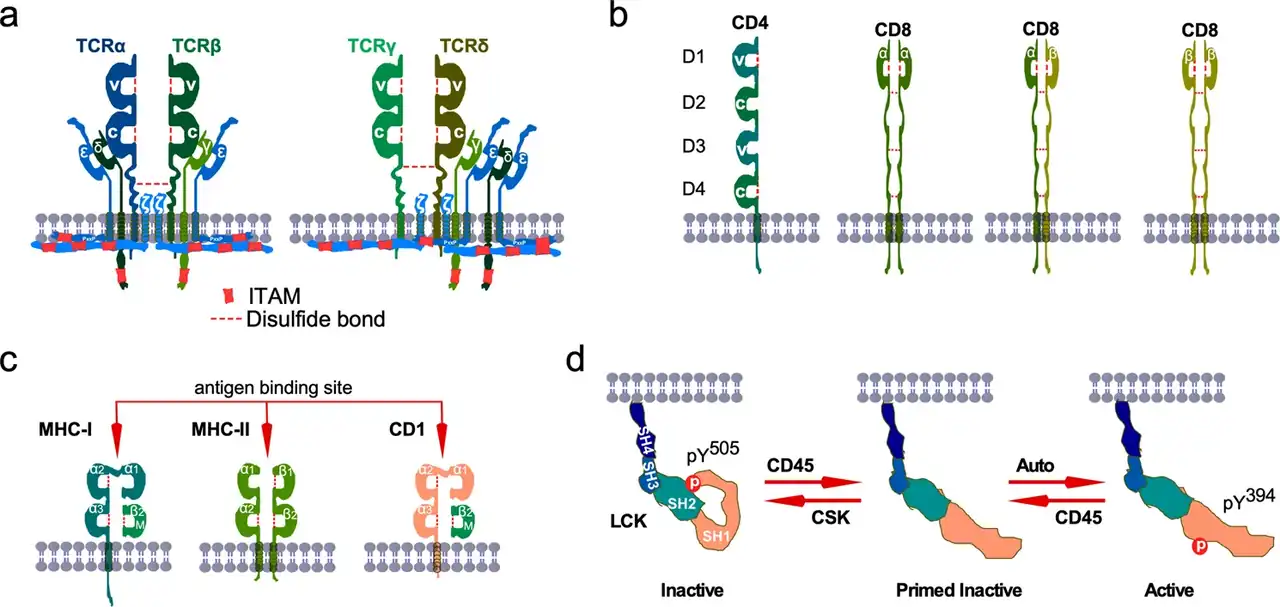
b Le corécepteur CD4 agit sous forme de molécule unique, tandis que CD8α et CD8β peuvent former des homodimères ou des hétérodimères
c Le CMH de classe I (CMH-I) se compose d’une chaîne α contenant trois domaines de type immunoglobuline (α1, α2, α3) et de la β2-microglobuline (β2m). Le CMH de classe II (CMH-II) est un hétérodimère constitué d’une chaîne α et d’une chaîne β, chacune contenant deux domaines de type immunoglobuline (α1, α2 pour la chaîne α et β1, β2 pour la chaîne β).
d Les molécules CD4 associées à LCK se lient au complexe TCR (TCRα/TCRβ) engagé par le CMH II. Cela permet à LCK de phosphoryler deux sites distincts des ITAM. ZAP-70 se fixe ensuite aux sites phosphotyrosine et induit des phosphorylations supplémentaires. L’interaction CD4–CMH II est médiée par les domaines α2 et β2 proximaux à la membrane du CMH II et par le domaine D1 distal à la membrane de CD4.
Chaque chaîne du récepteur des cellules T est un membre de la superfamille des immunoglobulines (Ig), et possède un domaine Ig N-terminal variable (V), un domaine Ig constant (C), un domaine transmembranaire et un court domaine cytoplasmique C-terminal. La partie variable de la chaîne alpha possède trois domaines hypervariables ou complementarity determining regions (CDR)), tandis que la chaîne bêta en compte quatre. CDR3 est le principal CDR impliqué dans la reconnaissance de l’antigène présenté, CDR1 de la chaîne alpha interagit avec le côté N-terminal du peptide, tandis que le CDR1 de la chaîne bêta interagit avec le côté C-terminal. On pense que CDR2 reconnaît le complexe majeur d'histocompatibilité (CMH). Il a été montré que le CDR4 de la chaîne bêta n'intervient pas dans la reconnaissance de l’antigène, mais interagit avec les superantigènes.
Complexe récepteur des lymphocytes T-CD3
Le génome humain exprime quatre gènes du récepteur des lymphocytes T, appelés TCRα, TCRβ, TCRγ et TCRδ, qui forment deux hétérodimères distincts : TCRα/TCRβ ou TCRγ/TCRδ[14],[15],[16]. La majorité des lymphocytes T matures exprime les isoformes TCRα et TCRβ, généralement désignés sous le nom de lymphocytes T (ou lymphocytes T αβ), tandis qu’une faible proportion (0,5–5 %) des lymphocytes T (les lymphocytes T γδ) exprime les isoformes TCRγ et TCRδ[17].
Les deux hétérodimères forment des complexes multiprotéiques avec les chaînes CD3 δ, γ, ε et ζ. Les chaînes du récepteur des lymphocytes T se composent d’une région extracellulaire, d’une région transmembranaire et d’une queue cytoplasmique plus courte. La région extracellulaire contient un domaine variable de type immunoglobuline (V), un domaine constant de type immunoglobuline (C) et un peptide de connexion[18]. Les recombinases RAG1 et RAG2 facilitent l’assemblage du domaine V à partir de segments géniques qui constituent le site de reconnaissance de l’antigène. Le domaine C est utilisé pour les interactions avec les chaînes CD3.
Il existe des différences structurales considérables entre les chaînes αβ et γδ en termes de domaine C et de peptide de connexion, différences qui se reflètent également dans l’assemblage des complexes du récepteur des lymphocytes T, la forme de surface et la distribution des charges[19],[20],[21],[22]. Toutefois, dans les deux complexes, trois dimères de protéines CD3 sont présents : les hétérodimères δε et γε, ainsi que les homodimères ζζ[21],[23]. Ces protéines CD3 s’associent au récepteur des lymphocytes T par des interactions hydrophobes non covalentes et sont nécessaires à une localisation complète du récepteur des lymphocytes T à la surface cellulaire
Co-récepteurs du récepteur des lymphocytes T
Les premières études ont montré que des lymphocytes T exprimant un hétérodimère commun TCRα/TCRβ mais ayant des fonctions distinctes — par exemple, les lymphocytes T cytotoxiques qui détruisent directement les cellules infectées et un sous-ensemble de lymphocytes T auxiliaires qui aident les lymphocytes B — peuvent être facilement distingués par l’expression de molécules de surface cellulaire mutuellement exclusives, CD8 et CD4[24],[25],[26]. Des études ultérieures ont indiqué que ces deux récepteurs jouent un rôle important dans l’association avec les molécules du complexe majeur d'histocompatibilité et sont donc appelés corécepteurs[27],[28],[29].Les molécules CD4 et CD8 jouent toutes deux un rôle crucial au cours du développement des lymphocytes T en aidant le complexe TCR à sélectionner différentes classes de molécules du complexe majeur d'histocompatibilité[30].
À l’instar des molécules du récepteur des lymphocytes T, les molécules CD4 et CD8 possèdent un domaine extracellulaire, un domaine transmembranaire et une courte queue intracellulaire[31]. Bien que CD8 et CD4 agissent tous deux comme corécepteurs avec des fonctions similaires, ils ne présentent qu’une faible similarité structurale. Le domaine extracellulaire de CD4 contient deux domaines de type V (D1 et D3) et deux domaines de type C. CD4 agit comme un monomère à la surface des lymphocytes T, utilisant le domaine D1 pour la reconnaissance du complexe majeur d'histocompatibilité et la queue cytoplasmique pour l’interaction avec la tyrosine kinase spécifique des lymphocytes non réceptrice[32].
En revanche, le domaine extracellulaire de CD8 ne contient qu’un seul domaine de type V. Toutefois, deux isoformes de CD8, CD8α et CD8β, sont exprimées et peuvent former des homo- ou des hétérodimères. La majorité des lymphocytes T CD8 positifs expriment CD8 sous forme d’hétérodimère ; certains lymphocytes T CD8 positifs — par exemple les lymphocytes intraépithéliaux et les précurseurs de cellules mémoire — l’expriment sous forme d’homodimère αα[33],[34],[35].
Ligands du récepteur des lymphocytes T
Les ligands des lymphocytes T sont divisés en deux classes : le complexe majeur d'histocompatibilité de classe I et le complexe majeur d'histocompatibilité de classe II. Les complexes majeurs d'histocompatibilité de classe I humains sont des complexes constitués d’antigènes leucocytaires humains (HLA : HLA-A, HLA-B et HLA-C) associés à la β2-microglobuline, tandis que les complexes majeurs d'histocompatibilité de classe II sont des hétérodimères composés de plusieurs HLA (HLA-DP, HLA-DQ et HLA-DR)[36].
Les molécules de complexe majeur d'histocompatibilité I liées à un peptide antigénique peuvent être présentées par toutes les cellules nucléées et sont reconnues par les lymphocytes T CD8⁺. En revanche, les lymphocytes T CD4⁺ reconnaissent les molécules de complexe majeur d'histocompatibilité II liées à un peptide antigénique, qui sont présentées par les cellules présentatrices d’antigènes , telles que les lymphocytes B, les macrophages et les cellules dendritiques[36].
Outre la présentation de peptides par les molécules du complexe majeur d'histocompatibilité, certains antigènes lipidiques sont présentés par des molécules structurellement similaires au complexe majeur d'histocompatibilité II, telles que les protéines de la famille CD1[37],[38].
Tyrosine kinase spécifique des lymphocytes
La tyrosine kinase spécifique des lymphocytes (LCK) est un membre de la famille des kinases SRC (SFK). Les kinases SRC constituent une famille de dix tyrosine kinases protéiques (PTK) non réceptrices, structurellement similaires, impliquées dans diverses fonctions cellulaires. Toutes les kinases SRC contiennent des domaines régulateurs hautement conservés (SH3 et SH2), un domaine tyrosine kinase protéique (SH1), une queue C-terminale et une région N-terminale faiblement conservée (domaine SH4). Le domaine SH4 contient un site de myristoylation par lequel les kinases SRC s’ancrent à la membrane[39]. Le domaine SH3 reconnaît généralement des motifs riches en proline, et le domaine SH2 interagit avec des résidus phosphotyrosine[40].
Activation
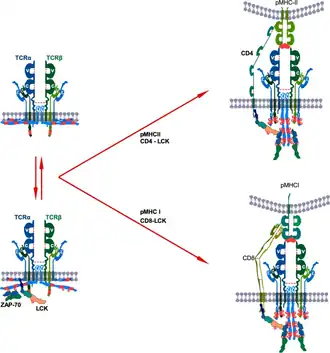
La signalisation précoce des lymphocytes T débute en quelques secondes, l’activation du récepteur des lymphocytes T constituant la première étape. Elle repose sur l’activation de tyrosine kinases protéiques, principalement LCK, ainsi que FYN et ZAP-70, qui assurent la phosphorylation des chaînes CD3[6],[8]. Les queues cytosoliques des chaînes CD3 contiennent des motifs ITAM, chacun composé de deux résidus tyrosine. Les chaînes CD3δ, γ et ε possèdent un ITAM chacune, tandis que chaque chaîne CD3ζ en contient trois, soit dix ITAM par complexe récepteur des lymphocytes T–CD3[6]. La phosphorylation des ITAM, initiée essentiellement par LCK, est indispensable à l’activation du récepteur des lymphocytes T.[41],[42]
Le complexe récepteur des lymphocytes T–CD3 ne possédant pas d’activité kinase intrinsèque, LCK doit être recrutée à la membrane plasmique. Cette localisation est assurée soit par des modifications lipidiques, soit par l’association de LCK avec les corécepteurs CD4 ou CD8[43],[44]. L’interaction dépend d’un motif proline présent dans CD4 et CD8α, permettant uniquement aux dimères CD8αα et CD8αβ de recruter LCK, contrairement au dimère CD8ββ[45],[46].
Les lymphocytes T exprimant CD4 ou CD8, le récepteur des lymphocytes T lié au peptide–complexe majeur d'histocompatibilité interagit avec ces corécepteurs. CD4 se lie au complexe majeur d'histocompatibilité de classe II via son domaine D1, tandis que CD8 (αα ou αβ) se lie au complexe majeur d'histocompatibilité de classe I via la β2-microglobuline et les domaines α3 et α2[47],[48]. Ces interactions favorisent la stabilité du complexe, le recrutement de LCK et l’initiation efficace de la signalisation du récepteur des lymphocytes T. [49],[50]
Voir aussi
Références
- ↑ Thilipan Thaventhiran, « T Cell Co-inhibitory Receptors-Functions and Signalling Mechanisms », Journal of Clinical & Cellular Immunology, vol. 01, no S12, (PMID 23946894, PMCID 3740441, DOI 10.4172/2155-9899.S12-005, lire en ligne, consulté le )
- ↑ (en) Jean S. Marshall, Richard Warrington, Wade Watson et Harold L. Kim, « An introduction to immunology and immunopathology », Allergy, Asthma & Clinical Immunology, vol. 14, no 2, , p. 49 (ISSN 1710-1492, PMID 30263032, PMCID 6156898, DOI 10.1186/s13223-018-0278-1, lire en ligne, consulté le )
- ↑ (en) Christine Tran Quang, Benedetta Zaniboni et Jacques Ghysdael, « A TCR-switchable cell death pathway in T-ALL », Oncoscience, vol. 4, nos 3-4, , p. 17–18 (ISSN 2331-4737, PMID 28540327, PMCID 5441467, DOI 10.18632/oncoscience.342, lire en ligne, consulté le )
- ↑ (en) Juan Carlos Zúñiga-Pflücker, « T-cell development made simple », Nature Reviews Immunology, vol. 4, no 1, , p. 67–72 (ISSN 1474-1741, DOI 10.1038/nri1257, lire en ligne, consulté le )
- ↑ Federica Sallusto, Jens Geginat et Antonio Lanzavecchia, « Central Memory and Effector Memory T Cell Subsets: Function, Generation, and Maintenance », Annual Review of Immunology, vol. 22, no Volume 22, 2004, , p. 745–763 (ISSN 0732-0582 et 1545-3278, DOI 10.1146/annurev.immunol.22.012703.104702, lire en ligne, consulté le )
- Lawrence E. Samelson, « Signal Transduction Mediated by the T Cell Antigen Receptor: The Role of Adapter Proteins* », Annual Review of Immunology, vol. 20, no Volume 20, 2002, , p. 371–394 (ISSN 0732-0582 et 1545-3278, DOI 10.1146/annurev.immunol.20.092601.111357, lire en ligne, consulté le )
- ↑ (en) Doreen A. Cantrell, « T‐cell antigen receptor signal transduction », Immunology, vol. 105, no 4, , p. 369–374 (ISSN 0019-2805 et 1365-2567, PMID 11985657, PMCID 1782684, DOI 10.1046/j.1365-2567.2002.01391.x, lire en ligne, consulté le )
- (en) Jeong-Ryul Hwang, Yeongseon Byeon, Donghwan Kim et Sung-Gyoo Park, « Recent insights of T cell receptor-mediated signaling pathways for T cell activation and development », Experimental & Molecular Medicine, vol. 52, no 5, , p. 750–761 (ISSN 2092-6413, PMID 32439954, PMCID 7272404, DOI 10.1038/s12276-020-0435-8, lire en ligne, consulté le )
- ↑ (en) Adam H. Courtney, Wan-Lin Lo et Arthur Weiss, « TCR Signaling: Mechanisms of Initiation and Propagation », Trends in Biochemical Sciences, vol. 43, no 2, , p. 108–123 (PMID 29269020, PMCID 5801066, DOI 10.1016/j.tibs.2017.11.008, lire en ligne, consulté le )
- G. A. Koretzky et N. J. Boerth, « The role of adapter proteins in T cell activation », Cellular and Molecular Life Sciences (CMLS), vol. 56, nos 11-12, , p. 1048–1060 (ISSN 1420-682X et 1420-9071, PMID 11212321, PMCID 11147124, DOI 10.1007/s000180050492, lire en ligne, consulté le )
- ↑ (en) Evelyn Gerth et Jochen Mattner, « The Role of Adaptor Proteins in the Biology of Natural Killer T (NKT) Cells », Frontiers in Immunology, vol. 10, (ISSN 1664-3224, PMID 31293596, PMCID 6603179, DOI 10.3389/fimmu.2019.01449, lire en ligne, consulté le )
- ↑ (en) Daniel C. Flynn, « Adaptor proteins », Oncogene, vol. 20, no 44, , p. 6270–6272 (ISSN 1476-5594, DOI 10.1038/sj.onc.1204769, lire en ligne, consulté le )
- (en) Beverley Wilkinson, Hongyan Wang et Christopher E. Rudd, « Positive and negative adaptors in T‐cell signalling », Immunology, vol. 111, no 4, , p. 368–374 (ISSN 0019-2805 et 1365-2567, DOI 10.1111/j.0019-2805.2004.01832.x, lire en ligne, consulté le )
- ↑ (en) Jonathan P. Rast, Michele K. Anderson, Scott J. Strong et Carl Luer, « α, β, γ, and δ T Cell Antigen Receptor Genes Arose Early in Vertebrate Phylogeny », Immunity, vol. 6, no 1, , p. 1–11 (DOI 10.1016/S1074-7613(00)80237-X, lire en ligne, consulté le )
- ↑
- ↑ (en) Ludovica Bruno, Hans Jörg Fehling et Harald von Boehmer, « The αβ T Cell Receptor Can Replace the γδ Receptor in the Development of γδ Lineage Cells », Immunity, vol. 5, no 4, , p. 343–352 (DOI 10.1016/S1074-7613(00)80260-5, lire en ligne, consulté le )
- ↑ (en) Yijing Zhao, Chao Niu et Jiuwei Cui, « Gamma-delta (γδ) T cells: friend or foe in cancer development? », Journal of Translational Medicine, vol. 16, no 1, , p. 3 (ISSN 1479-5876, PMID 29316940, PMCID 5761189, DOI 10.1186/s12967-017-1378-2, lire en ligne, consulté le )
- ↑ Gijs I. van Boxel, Samantha Holmes, Lars Fugger et E. Yvonne Jones, « An Alternative Conformation of the T-Cell Receptor α Constant Region », Journal of Molecular Biology, vol. 400, no 4, , p. 828–837 (ISSN 0022-2836, PMID 20630474, PMCID 2930249, DOI 10.1016/j.jmb.2010.05.053, lire en ligne, consulté le )
- ↑ (en) Timothy J. Allison, Christine C. Winter, Jean-Jacques Fournié et Marc Bonneville, « Structure of a human γδ T-cell antigen receptor », Nature, vol. 411, no 6839, , p. 820–824 (ISSN 1476-4687, DOI 10.1038/35081115, lire en ligne, consulté le )
- ↑ (en) Maki Touma, Hsiu-Ching Chang, Tetsuro Sasada et Maris Handley, « The TCR Cβ FG Loop Regulates αβ T Cell Development », The Journal of Immunology, vol. 176, no 11, , p. 6812–6823 (ISSN 0022-1767 et 1550-6606, DOI 10.4049/jimmunol.176.11.6812, lire en ligne, consulté le )
- (en) Anna Morath et Wolfgang W. Schamel, « αβ and γδ T cell receptors: Similar but different », Journal of Leukocyte Biology, vol. 107, no 6, , p. 1045–1055 (ISSN 1938-3673 et 0741-5400, DOI 10.1002/JLB.2MR1219-233R, lire en ligne, consulté le )
- ↑ (en) De Dong, Lvqin Zheng, Jianquan Lin et Bailing Zhang, « Structural basis of assembly of the human T cell receptor–CD3 complex », Nature, vol. 573, no 7775, , p. 546–552 (ISSN 1476-4687, DOI 10.1038/s41586-019-1537-0, lire en ligne, consulté le )
- ↑ Andrés Alcover, Balbino Alarcón et Vincenzo Di Bartolo, « Cell Biology of T Cell Receptor Expression and Regulation », Annual Review of Immunology, vol. 36, no Volume 36, 2018, , p. 103–125 (ISSN 0732-0582 et 1545-3278, DOI 10.1146/annurev-immunol-042617-053429, lire en ligne, consulté le )
- ↑ (en) Shane Crotty, « A brief history of T cell help to B cells », Nature Reviews Immunology, vol. 15, no 3, , p. 185–189 (ISSN 1474-1741, PMID 25677493, PMCID 4414089, DOI 10.1038/nri3803, lire en ligne, consulté le )
- ↑ (en) Fritz H. Bach, Marilyn L. Bach et Paul M. Sondel, « Differential function of major histocompatibility complex antigens in T-lymphocyte activation », Nature, vol. 259, no 5541, , p. 273–281 (ISSN 1476-4687, DOI 10.1038/259273a0, lire en ligne, consulté le )
- ↑ (en) H. Cantor et E. A. Boyse, « Regulation of Cellular and Humoral Immune Responses by T-cell Subclasses », Cold Spring Harbor Symposia on Quantitative Biology, vol. 41, no 0, , p. 23–32 (ISSN 0091-7451 et 1943-4456, DOI 10.1101/SQB.1977.041.01.006, lire en ligne, consulté le )
- ↑ Wilfried Ellmeier, Shinichiro Sawada et Dan R. Littman, « THE REGULATION OF CD4 AND CD8 CORECEPTOR GENE EXPRESSION DURING T CELL DEVELOPMENT », Annual Review of Immunology, vol. 17, no Volume 17, 1999, , p. 523–554 (ISSN 0732-0582 et 1545-3278, DOI 10.1146/annurev.immunol.17.1.523, lire en ligne, consulté le )
- ↑ (en) Wilfried Ellmeier, Lena Haust et Roland Tschismarov, « Transcriptional control of CD4 and CD8 coreceptor expression during T cell development », Cellular and Molecular Life Sciences, vol. 70, no 23, , p. 4537–4553 (ISSN 1420-9071, PMID 23793512, PMCID 3827898, DOI 10.1007/s00018-013-1393-2, lire en ligne, consulté le )
- ↑ (en) Joseph Lustgarten, Tova Waks et Zelig Eshhar, « CD4 and CD8 accessory molecules function through interactions with major histocompatibility complex molecules which are not directly associated with the T cell receptor‐antigen complex », European Journal of Immunology, vol. 21, no 10, , p. 2507–2515 (ISSN 0014-2980 et 1521-4141, DOI 10.1002/eji.1830211030, lire en ligne, consulté le )
- ↑ (en) Shane Crotty, « T Follicular Helper Cell Biology: A Decade of Discovery and Diseases », Immunity, vol. 50, no 5, , p. 1132–1148 (PMID 31117010, PMCID 6532429, DOI 10.1016/j.immuni.2019.04.011, lire en ligne, consulté le )
- ↑ (en) Daniel J. Leahy, « A structural view of CD4 and CD8 », The FASEB Journal, vol. 9, no 1, , p. 17–25 (ISSN 0892-6638 et 1530-6860, DOI 10.1096/fasebj.9.1.7821755, lire en ligne, consulté le )
- ↑ (en) Gabriela Hernández-Hoyos, Sue J Sohn, Ellen V Rothenberg et José Alberola-Ila, « Lck Activity Controls CD4/CD8 T Cell Lineage Commitment », Immunity, vol. 12, no 3, , p. 313–322 (DOI 10.1016/S1074-7613(00)80184-3, lire en ligne, consulté le )
- ↑ (en) Rose Zamoyska, « The CD8 coreceptor revisited: One chain good, two chains better », Immunity, vol. 1, no 4, , p. 243–246 (DOI 10.1016/1074-7613(94)90075-2, lire en ligne, consulté le )
- ↑ (en) Loui T. Madakamutil, Urs Christen, Christopher J. Lena et Yiran Wang-Zhu, « CD8αα-Mediated Survival and Differentiation of CD8 Memory T Cell Precursors », Science, vol. 304, no 5670, , p. 590–593 (ISSN 0036-8075 et 1095-9203, DOI 10.1126/science.1092316, lire en ligne, consulté le )
- ↑ (en) Sangwon V. Kim et Richard A. Flavell, « CD8αα and T Cell Memory », Science, vol. 304, no 5670, , p. 529–530 (ISSN 0036-8075 et 1095-9203, DOI 10.1126/science.1097678, lire en ligne, consulté le )
- (en) Marek Wieczorek, Esam T. Abualrous, Jana Sticht et Miguel Álvaro-Benito, « Major Histocompatibility Complex (MHC) Class I and MHC Class II Proteins: Conformational Plasticity in Antigen Presentation », Frontiers in Immunology, vol. 8, (ISSN 1664-3224, PMID 28367149, PMCID 5355494, DOI 10.3389/fimmu.2017.00292, lire en ligne, consulté le )
- ↑ (en-US) « Chapter 1 Antigen Presentation by CD1: Lipids, T Cells, and NKT Cells in Microbial Immunity », dans Advances in Immunology, vol. 102, Academic Press, , 1–94 p. (DOI 10.1016/S0065-2776(09)01201-2, lire en ligne)
- ↑ Jackman, R. M., Moody, D. B. & Porcelli, S. A. Mechanisms of lipid antigen presentation by CD1. Crit. Rev. Immunol. 19, 49–63 (1999)
- ↑ (en) Parag Patwardhan et Marilyn D. Resh, « Myristoylation and Membrane Binding Regulate c-Src Stability and Kinase Activity », Molecular and Cellular Biology, vol. 30, no 17, , p. 4094–4107 (ISSN 1098-5549, PMID 20584982, PMCID 2937550, DOI 10.1128/MCB.00246-10, lire en ligne, consulté le )
- ↑ (en) Kalle Saksela et Perttu Permi, « SH3 domain ligand binding: What's the consensus and where's the specificity? », FEBS Letters, vol. 586, no 17, , p. 2609–2614 (ISSN 0014-5793 et 1873-3468, DOI 10.1016/j.febslet.2012.04.042, lire en ligne, consulté le )
- ↑ (en) Makio Iwashima, Bryan A. Irving, Nicolai S. C. van Oers et Andrew C. Chan, « Sequential Interactions of the TCR with Two Distinct Cytoplasmic Tyrosine Kinases », Science, vol. 263, no 5150, , p. 1136–1139 (ISSN 0036-8075 et 1095-9203, DOI 10.1126/science.7509083, lire en ligne, consulté le )
- ↑ (en) Nicholas R. J. Gascoigne, Javier Casas, Joanna Brzostek et Vasily Rybakin, « Initiation of TCR Phosphorylation and Signal Transduction », Frontiers in Immunology, vol. 2, (ISSN 1664-3224, PMID 22566861, PMCID 3342367, DOI 10.3389/fimmu.2011.00072, lire en ligne, consulté le )
- ↑ (en) Bruno Laugel, Hugo A. van den Berg, Emma Gostick et David K. Cole, « Different T Cell Receptor Affinity Thresholds and CD8 Coreceptor Dependence Govern Cytotoxic T Lymphocyte Activation and Tetramer Binding Properties », Journal of Biological Chemistry, vol. 282, no 33, , p. 23799–23810 (DOI 10.1074/jbc.M700976200, lire en ligne, consulté le )
- ↑ (en-US) « CD4⧸CD8 Coreceptors in Thymocyte Development, Selection, and Lineage Commitment: Analysis of the CD4⧸CD8 Lineage Decision », dans Advances in Immunology, vol. 83, Academic Press, , 91–131 p. (DOI 10.1016/S0065-2776(04)83003-7, lire en ligne)
- ↑ (en) Morgan Huse, Michael J. Eck et Stephen C. Harrison, « A Zn2+ Ion Links the Cytoplasmic Tail of CD4 and the N-terminal Region of Lck », Journal of Biological Chemistry, vol. 273, no 30, , p. 18729–18733 (DOI 10.1074/jbc.273.30.18729, lire en ligne, consulté le )
- ↑ (en) Peter W. Kim, Zhen-Yu J. Sun, Stephen C. Blacklow et Gerhard Wagner, « A Zinc Clasp Structure Tethers Lck to T Cell Coreceptors CD4 and CD8 », Science, vol. 301, no 5640, , p. 1725–1728 (ISSN 0036-8075 et 1095-9203, DOI 10.1126/science.1085643, lire en ligne, consulté le )
- ↑ (en) Yili Li et Roy Mariuzza, « Structural and Biophysical Insights into the Role of CD4 and CD8 in T Cell Activation », Frontiers in Immunology, vol. 4, (ISSN 1664-3224, PMID 23885256, PMCID 3717711, DOI 10.3389/fimmu.2013.00206, lire en ligne, consulté le )
- ↑ (en) George F. Gao, José Tormo, Ulrich C. Gerth et Jessica R. Wyer, « Crystal structure of the complex between human CD8αα and HLA-A2 », Nature, vol. 387, no 6633, , p. 630–634 (ISSN 1476-4687, DOI 10.1038/42523, lire en ligne, consulté le )
- ↑ P. Anton van der Merwe et Simon J. Davis, « Molecular Interactions Mediating T Cell Antigen Recognition », Annual Review of Immunology, vol. 21, no Volume 21, 2003, , p. 659–684 (ISSN 0732-0582 et 1545-3278, DOI 10.1146/annurev.immunol.21.120601.141036, lire en ligne, consulté le )
- ↑ (en) Sun Taek Kim, Koh Takeuchi, Zhen-Yu J. Sun et Maki Touma, « The αβ T Cell Receptor Is an Anisotropic Mechanosensor », Journal of Biological Chemistry, vol. 284, no 45, , p. 31028–31037 (DOI 10.1074/jbc.M109.052712, lire en ligne, consulté le )
Bibliographie
 : document utilisé comme source pour la rédaction de cet article.
- Shah, K., Al-Haidari, A., Sun, J. et al. T cell receptor (TCR) signaling in health and disease. Sig Transduct Target Ther 6, 412 (2021). https://doi.org/10.1038/s41392-021-00823-w
Liens externes
- Ressource relative à la santé :
 Portail de la biologie