CD44 (récepteur)


Le CD44 est un récepteur d’adhésion gylycoprotéique de surface cellulaire fortement exprimé dans de nombreux cancers et qui régule la métastase via le recrutement de CD44 à la surface cellulaire. Son interaction avec des ligands appropriés de la matrice extracellulaire favorise les processus de migration et d’invasion impliqués dans les métastases. Il a été initialement identifié comme un récepteur de l’hyaluronane ou de l’acide hyaluronique, puis ultérieurement comme un récepteur de plusieurs autres ligands, notamment l’ostéopontine, les collagènes et les métalloprotéinases de la matrice. CD44 a également été identifié comme un marqueur de cellules souches de plusieurs types. Outre le CD44 standard, des isoformes variantes de CD44 ont été montrées comme étant générées par épissage alternatif de l’ARN messager dans plusieurs cancers.
Il est codé par le gène CD 44 situé sur le chromosome 11. C'est le seul membre de la classe K des récepteurs éboueurs.
Structure
Le CD44 est une glycoprotéine transmembranaire également appelée P-glycoprotéine 1. Elle est codée par un gène unique localisé sur le locus chromosomique 11p13[5],[6]. CD44 est exprimée de manière ubiquitaire dans l’organisme et possède un poids moléculaire compris entre 85 et 200 kDa[7].
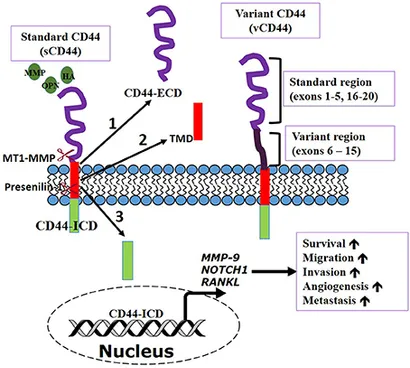
Le CD44 standard est la forme conservée, avec un poids moléculaire d’environ 85–90 kDa ; il résulte de la transcription des exons 1 à 5 et 16 à 20, qui sont ensuite épissés ensemble[8],[9]. Les principaux domaines de CD44 sont le domaine extracellulaire (ou ectodomaine), le domaine transmembranaire et le domaine intracellulaire/cytoplasmique[6]. Le domaine extracellulaire interagit avec le microenvironnement externe et perçoit les stimuli provenant de celui-ci[5]. Le domaine transmembranaire constitue une plateforme d’interaction avec des cofacteurs et des protéines adaptatrices, et participe également au guidage (homing) des lymphocytes[5],[10]. Le domaine intracellulaire de CD44 (CD44-ICD) présente des configurations à queue courte et à queue longue, impliquées dans la localisation nucléaire et la médiation de la transcription[11],[10].
Isoformes de CD44
Un certain nombre d'isoformes a été décrit, dues à un épissage alternatif[12].
De multiples isoformes de CD44 peuvent être générées en raison de l’insertion d’exons alternatifs à des sites spécifiques au sein du domaine extracellulaire[13]. Les isoformes variantes de CD44 comprennent les exons 6 à 15, épissés à différents sites entre les exons 5 et 16 de l’isoforme standard[14],[15]. L’expression d’isoformes distinctes de CD44 semble être nécessaire à la progression des tumeurs humaines[16],[17].
Une ou plusieurs variantes d’épissage, ainsi que le CD44 standard, peuvent être exprimées dans les cellules cancéreuses. Il existe une probabilité accrue d’expression d’isoformes de plus grande taille, telles que CD44v8-10 dans les cancers du pancréas[8] et CD44v6 dans le cancer colorectal[18]. L’expression de CD44v6 est bien connue comme un marqueur utile de la progression tumorale et du pronostic dans le cancer colorectal[18].
Expression de CD44 dans les cellules normales et tumorales
La molécule transmembranaire ubiquitaire de surface cellulaire CD44 est largement distribuée dans les tissus normaux adultes et fœtaux. L’isoforme standard de CD44 a été initialement isolée à partir de cellules hématopoïétiques, mais elle est aujourd’hui retrouvée dans une grande variété de tissus, tels que le système nerveux central, le poumon et l’épiderme. En comparaison, la distribution des isoformes variantes de CD44 est plus restreinte et leur expression est limitée à un sous-ensemble de cellules épithéliales[19].
Les isoformes à distribution restreinte et à séquence d’exons spécifique peuvent exercer des fonctions différentes de celles de l’isoforme standard de CD44. Les kératinocytes, les macrophages et certaines cellules épithéliales expriment les isoformes variantes de CD44 (CD44v), lesquelles sont présentes dans les tissus à différents stades du développement[19]. Dans les tissus normaux, CD44 joue un rôle essentiel dans la régulation du métabolisme de l’acide hyaluronique, l’activation des lymphocytes et la libération de cytokines. Toutefois, le ciblage de CD44 entraînant sa perte conduit à des perturbations du métabolisme de l’acide hyaluronique, de la cicatrisation et de la prolifération des kératinocytes[20].
Parmi les nombreuses fonctions de CD44, l’une consiste à conférer à des lignées cellulaires non métastatiques un potentiel métastatique accru[21]. Les mécanismes conférant à CD44 un potentiel métastatique dans les tumeurs humaines restent à élucider plus en détail. Les cellules prostatiques bénignes expriment davantage l’isoforme variante 5 de CD44 (CD44v5), tandis que les cellules prostatiques néoplasiques expriment des niveaux plus élevés de CD44 standard[22]. Par ailleurs, diverses cellules de cancer du sein présentent une expression anormale de CD44, incluant une expression hétérogène des différentes isoformes de CD44[7].
Interaction récepteur–ligand de CD44
CD44 est connu pour interagir avec divers ligands, et cette interaction est essentielle à ses nombreuses fonctions cellulaires. Plusieurs ligands de CD44 sont bien caractérisés, notamment l’acide hyaluronique, l’ostéopontine, les collagènes et les métalloprotéinases de la matrice. Les effets de CD44 sur la migration et la croissance cellulaires dépendent de sa spécificité vis-à-vis de ses ligands.
Hyaluronane
L’hyaluronane est un glycosaminoglycane constituant ubiquitaire de la matrice extracellulaire. Il est considéré comme le ligand majeur de CD44 et peut se lier aux isoformes variantes de CD44, qui sont largement exprimées. Par la liaison à CD44, l’HA peut activer des voies de signalisation impliquant le cytosquelette et les métalloprotéinases de la matrice, participant ainsi à la progression tumorale[23]. Plusieurs régions du domaine cytoplasmique de CD44 peuvent favoriser l’augmentation de la liaison à l’hyaluronane ; cependant, le rôle du domaine cytoplasmique dans la médiation de cette interaction ne nécessite pas une séquence spécifique d’acides aminés dans les cellules de lymphome T[24]. L’hyaluronane peut exister sous forme de haut poids moléculaire ou de faible poids moléculaire, en raison de son clivage en fragments de tailles variables. Dans les lignées cellulaires de cancer du sein, l’hyaluronane de haut poids moléculaire est impliqué dans la tumorigenèse ainsi que dans des réponses antiangiogéniques et anti-inflammatoires. En revanche, l’hyaluronane de faible poids moléculaire favorise la motilité cellulaire, le clivage de CD44 et l’angiogenèse. Ainsi, la taille du ligand hyaluronane est déterminante pour sa fonction biologique[25].
Ostéopontine
L’ostéopontine est fortement exprimée dans de nombreux cancers humains agressifs et métastatiques[26]. Elle se lie principalement à CD44 et à certaines intégrines, notamment l’intégrine αvβ3, via une séquence de liaison cellulaire spécifique appelée RGD[27]. Dans le cancer de la prostate, l’ostéopontine joue un rôle clé dans la croissance et la progression tumorales grâce à des mécanismes de signalisation autocrines et paracrines[27]. L’interaction CD44–ostéopontine favorise la migration des cellules hors de la circulation sanguine vers des sites d’inflammation ou vers des tissus distants, un processus essentiel à la formation des métastases[28]. Les isoformes variantes de CD44 peuvent se lier à l’ostéopontine indépendamment de la séquence RGD, ce qui renforce la motilité et l’invasion cellulaires[29]. Cette interaction stimule également l’étalement cellulaire et le comportement chimiotactique, notamment dans les carcinomes pancréatiques[29]. Enfin, l’ostéopontine augmente l’expression de CD44 à la surface des cellules, aussi bien sous sa forme standard que sous ses isoformes variantes, dans différents types de cellules cancéreuses, notamment le mélanome, le cancer de la prostate, du sein et le carcinome hépatocellulaire.
Métalloprotéinases de la matrice
Les métalloprotéinases de la matrice sont des enzymes impliquées dans la dégradation de la matrice extracellulaire. Elles jouent un rôle essentiel dans de nombreux processus physiologiques, tels que le développement, la cicatrisation, la résorption osseuse et l’angiogenèse. Plusieurs études ont montré que la métalloprotéinase-9 peut s’associer à CD44 dans des cellules tumorales murines et humaines, permettant la localisation de l’activité de la métalloprotéinase-9 à la surface cellulaire[20]. Cette interaction est particulièrement importante dans l’invasion des cellules de cancer de la prostate issues de métastases osseuses, où la forme protéolytique active de la métalloprotéinase-9 est recrutée à la surface cellulaire par CD44[30]. Ainsi, la capacité de CD44 à concentrer la métalloprotéinase-9 active à la surface des cellules tumorales est un mécanisme clé favorisant l’invasion tumorale et la progression métastatique[20].
Rôles
Dans l'inflammation
Il agit comme un récepteur à l'acide hyaluronique[31], permettant la stabilisation et la régression d'une inflammation[32]. La protéine CD44 joue un rôle important dans le cancer[Comment ?], en particulier dans les cellules souches cancéreuses, où elle importe des métaux liés à l'acide hyaluronique dans les cellules[33]. En particulier, le fer est essentiel pour les changements épigénétiques[Quoi ?] qui suivent[réf. nécessaire]. Ce processus est aussi important pour l'import de cuivre dans les cellules immunitaires pendant l'inflammation[34].
Dans le cancer
Migration et invasion
Le récepteur CD44 joue un rôle central dans la migration et l’invasion des cellules cancéreuses en intégrant des fonctions d’adhérence et de signalisation au cours de la progression tumorale[35]. Les mécanismes par lesquels CD44 régule la migration, la prolifération et la survie des cellules tumorales, notamment via la signalisation dépendante de l’acide hyaluronique (HA), ont été largement étudiés[36]. La migration cellulaire repose sur des modifications de la forme cellulaire et sur la formation de structures d’adhérence, des processus étroitement contrôlés par la régulation dynamique du cytosquelette d’actine. Cette régulation dépend de la localisation spatio-temporelle de protéines liant l’actine[37]. Dans les cellules de cancer de la prostate PC3, l’expression de CD44 à la surface cellulaire et son interaction avec la métalloprotéinase MMP-9 entraînent la sécrétion de MMP-9 active, favorisant ainsi la migration et l’invasion cellulaires[30]. La perturbation de l’interaction CD44/MMP-9 réduit significativement ces capacités invasives. Dans le cancer de la prostate, l’expression de CD44v6 est inversement corrélée au stade pathologique et à la progression de la maladie, et positivement corrélée à la survie sans élévation du PSA[38]. Toutefois, dans d’autres modèles expérimentaux, l’expression de CD44v6 dans des cellules carcinomateuses non métastatiques a été montrée capable d’induire un phénotype métastatique et de favoriser la progression tumorale .
Angiogenèse
La formation de nouveaux vaisseaux sanguins (angiogenèse) est indispensable à la croissance tumorale et à la dissémination des cellules cancéreuses vers des organes distants. Des études antérieures ont montré que CD44 est exprimé à la surface des cellules endothéliales et qu’il joue un rôle clé dans la formation des vaisseaux sanguins[39]. L’inhibition de CD44 perturbe la formation de réseaux vasculaires, soulignant son importance dans l’angiogenèse tumorale[39],[40]. Des études menées chez des souris dépourvues de CD44 ont montré une altération de la cicatrisation et de la vascularisation, indiquant que la formation des métastases est étroitement liée à l’expression vasculaire de CD44[40].
L’adhésion des cellules cancéreuses aux vaisseaux sanguins, combinée à l’augmentation de l’expression de CD44 (sous forme standard et/ou variante) induite par des facteurs angiogéniques tels que le facteur de croissance de l'endothélium vasculaire, peut faciliter l’extravasation tumorale. De plus, le rôle de CD44 dans l’angiogenèse est renforcé par sa liaison à l’acide hyaluronique immobilisé. Les isoformes variantes de CD44 possèdent également des domaines de liaison pour plusieurs facteurs de croissance, dont le facteur de croissance de l'endothélium vasculaire, le facteur de croissance fibroblastique basique et le facteur de croissance épidermique lié à l’héparine[41].
Métastases osseuses
La capacité des cellules cancéreuses du sein et de la prostate à métastaser vers l’os repose sur leur aptitude à s’arrêter dans la circulation, à adhérer à l’endothélium de la moelle osseuse, puis à traverser cette barrière pour atteindre la matrice osseuse sous-jacente[42]. Dans le cancer de la prostate, cette adhésion sélective à l’endothélium de la moelle osseuse dépend en grande partie des propriétés adhésives des récepteurs intégrines, favorisant une interaction étroite entre les cellules tumorales et les cellules endothéliales de la moelle osseuse[43].
Concernant le cancer du sein, la littérature présente encore des divergences entre données cliniques et expérimentales quant au rôle du CD44 standard dans la progression de la maladie. Toutefois, des études récentes montrent que les modèles de cancer du sein expriment à la fois le CD44 standard et des isoformes variantes, ce qui est associé à une augmentation de la progression tumorale et du potentiel métastatique[44]. L’acide hyaluronique et CD44 co-localisent au niveau de l’endothélium sinusoïdal de la moelle osseuse, un site privilégié de métastases mammaires, suggérant que l’axe HA–CD44 favorise l’efficacité des métastases osseuses[44].
Les cellules exprimant de faibles niveaux de CD44 présentent une capacité réduite à former des sphéroïdes tumoraux in vitro. De plus, CD44 est reconnu comme un marqueur des cellules souches cancéreuses, et l’expression de CD44 par ces cellules augmente le risque de métastases osseuses via son interaction avec l’acide hyaluronique[45]. Ainsi, l’interaction CD44–HA représente une cible thérapeutique potentielle pour limiter les métastases osseuses. Dans le cancer de la prostate, la signalisation de CD44 régule également des protéines clés impliquées dans la différenciation des ostéoclastes et la métastase tumorale, telles que RANKL et MMP-9[46]. Enfin, le facteur de transcription Runx2, essentiel à la différenciation des ostéoblastes, contrôle l’expression de nombreux gènes liés à la formation osseuse, notamment l’ostéopontine, l’ostéocalcine et le collagène de type I[47].
Bibliographie
- (en) LT Senbanjo et MA Chellaiah, « CD44: A Multifunctional Cell Surface Adhesion Receptor Is a Regulator of Progression and Metastasis of Cancer Cells », Front. Cell Dev. Biol., vol. 5, no 18, (DOI https://doi.org/10.3389/fcell.2017.00018).
Notes et références
- GRCh38: Ensembl release 89: ENSG00000026508 - Ensembl, May 2017
- GRCm38: Ensembl release 89: ENSMUSG00000005087 - Ensembl, May 2017
- ↑ « Publications PubMed pour l'Homme », sur National Center for Biotechnology Information, U.S. National Library of Medicine
- ↑ « Publications PubMed pour la Souris », sur National Center for Biotechnology Information, U.S. National Library of Medicine
- (en) Charles Underhill, « CD44: The hyaluronan receptor », Journal of Cell Science, vol. 103, no 2, , p. 293–298 (ISSN 0021-9533 et 1477-9137, DOI 10.1242/jcs.103.2.293, lire en ligne, consulté le ).
- (en) Kenneth A. Iczkowski, « Alternate Splicing of CD44 Messenger RNA in Prostate Cancer Growth », Defense Technical Information Center, (lire en ligne, consulté le ).
- (en) Nawwaf S. Basakran, « CD44 as a potential diagnostic tumor marker », Saudi Medical Journal, vol. 36, no 3, , p. 273–279 (ISSN 0379-5284 et 1658-3175, PMID 25737167, PMCID 4381009, DOI 10.15537/smj.2015.3.9622, lire en ligne, consulté le ).
- (en) Christopher J.N. Rall et Anil K. Rustgi, « Novel CD44v6 isoform overexpressed in metastases of pancreatic adenocarcinoma », Gastroenterology, vol. 108, no 4, , A385 (ISSN 0016-5085, DOI 10.1016/0016-5085(95)24199-x, lire en ligne, consulté le ).
- ↑ (en) Z Rudzki et S Jothy, « CD44 and the adhesion of neoplastic cells. », Molecular Pathology, vol. 50, no 2, , p. 57–71 (ISSN 1366-8714, DOI 10.1136/mp.50.2.57, lire en ligne, consulté le ).
- (en) Karin Williams, Karan Motiani, Premkumar Vummidi Giridhar et Susan Kasper, « CD44 integrates signaling in normal stem cell, cancer stem cell and (pre)metastatic niches », Experimental Biology and Medicine, vol. 238, no 3, , p. 324–338 (ISSN 1535-3702 et 1535-3699, PMID 23598979, PMCID 11037417, DOI 10.1177/1535370213480714, lire en ligne, consulté le ).
- ↑ (en) Isamu Okamoto, Yoshiaki Kawano, Daizo Murakami et Takashi Sasayama, « Proteolytic release of CD44 intracellular domain and its role in the CD44 signaling pathway », The Journal of Cell Biology, vol. 155, no 5, , p. 755–762 (ISSN 1540-8140 et 0021-9525, PMID 11714729, PMCID 2150876, DOI 10.1083/jcb.200108159, lire en ligne, consulté le ).
- ↑ (en) G. Salles, M. Zain, WM Jiang, VA Boussiotis et MA Shipp, « Alternatively spliced CD44 transcripts in diffuse large-cell lymphomas: characterization and comparison with normal activated B cells and epithelial malignancies », Blood, vol. 82, , p. 3539-3547 (lire en ligne).
- ↑ (en) Joanna Cichy et Ellen Puré, « The liberation of CD44 », The Journal of Cell Biology, vol. 161, no 5, , p. 839–843 (ISSN 1540-8140 et 0021-9525, PMID 12796473, PMCID 2172964, DOI 10.1083/jcb.200302098, lire en ligne, consulté le ).
- ↑ (en) S Goodison, V Urquidi et D Tarin, « CD44 cell adhesion molecules. », Molecular Pathology, vol. 52, no 4, , p. 189–196 (ISSN 1366-8714 et 1472-4154, PMID 10694938, PMCID 395698, DOI 10.1136/mp.52.4.189, lire en ligne, consulté le ).
- ↑ (en) J Zeilstra, S P J Joosten, H van Andel et C Tolg, « Stem cell CD44v isoforms promote intestinal cancer formation in Apc(min) mice downstream of Wnt signaling », Oncogene, vol. 33, no 5, , p. 665–670 (ISSN 0950-9232 et 1476-5594, DOI 10.1038/onc.2012.611, lire en ligne, consulté le ).
- ↑ (en) U. Günthert, R. Stauder, B. Mayer, H. J. Terpe, L. Finke et K. Friedrichs, « Are CD44 variant isoforms involved in human tumour progression? », Cancer Surv., vol. 24, , p. 19–42 (PMID 7553660, lire en ligne).
- ↑ (en) Steven J. Wang, Gabriel Wong, Anne‐Martine de Heer et Weiliang Xia, « CD44 variant isoforms in head and neck squamous cell carcinoma progression », The Laryngoscope, vol. 119, no 8, , p. 1518–1530 (ISSN 0023-852X et 1531-4995, PMID 19507218, PMCID 2718060, DOI 10.1002/lary.20506, lire en ligne, consulté le ).
- (en) Nariyuki Yamane, Shunichi Tsujitani, Masato Makino et Michio Maeta, « Soluble CD44 Variant 6 as a Prognostic Indicator in Patients with Colorectal Cancer », Oncology, vol. 56, no 3, , p. 232–238 (ISSN 0030-2414 et 1423-0232, DOI 10.1159/000011970, lire en ligne, consulté le ).
- (en) R. J. Sneath et D. C. Mangham, « The normal structure and function of CD44 and its role in neoplasia », Molecular Pathology, vol. 51, no 4, , p. 191–200 (ISSN 1366-8714, PMID 9893744, PMCID 395635, DOI 10.1136/mp.51.4.191, lire en ligne, consulté le ).
- (en) Qin Yu et Ivan Stamenkovic, « Localization of matrix metalloproteinase 9 to the cell surface provides a mechanism for CD44-mediated tumor invasion », Genes & Development, vol. 13, no 1, , p. 35–48 (ISSN 0890-9369 et 1549-5477, PMID 9887098, PMCID 316376, DOI 10.1101/gad.13.1.35, lire en ligne, consulté le ).
- ↑ (en) K H Heider, M Hofmann, E Hors et F van den Berg, « A human homologue of the rat metastasis-associated variant of CD44 is expressed in colorectal carcinomas and adenomatous polyps. », The Journal of cell biology, vol. 120, no 1, , p. 227–233 (ISSN 0021-9525 et 1540-8140, PMID 8416989, PMCID 2119493, DOI 10.1083/jcb.120.1.227, lire en ligne, consulté le ).
- ↑ (en) B. Desai, T. Ma, J. Zhu et M.A. Chellaiah, « Characterization of the expression of variant and standard CD44 in prostate cancer cells: Identification of the possible molecular mechanism of CD44/MMP9 complex formation on the cell surface », Journal of Cellular Biochemistry, vol. 108, no 1, , p. 272–284 (ISSN 0730-2312 et 1097-4644, PMID 19582779, PMCID 7198262, DOI 10.1002/jcb.22248, lire en ligne, consulté le ).
- ↑ (en) « Hyaluronan–CD44 Interaction Promotes Oncogenic Signaling, microRNA Functions, Chemoresistance, and Radiation Resistance in Cancer Stem Cells Leading to Tumor Progression », dans Advances in Cancer Research, vol. 123, Elsevier, , 255–275 p. (ISBN 978-0-12-800092-2, DOI 10.1016/b978-0-12-800092-2.00010-1, lire en ligne).
- ↑ (en) Astrid Perschl, Jayne Lesley, Nicole English et Ian Trowbridge, « Role of CD44 cytoplasmic domain in hyaluronan binding », European Journal of Immunology, vol. 25, no 2, , p. 495–501 (ISSN 0014-2980 et 1521-4141, DOI 10.1002/eji.1830250228, lire en ligne, consulté le ).
- ↑ (en) Jeanne M.V. Louderbough et Joyce A. Schroeder, « Understanding the Dual Nature of CD44 in Breast Cancer Progression », Molecular Cancer Research, vol. 9, no 12, , p. 1573–1586 (ISSN 1541-7786 et 1557-3125, DOI 10.1158/1541-7786.MCR-11-0156, lire en ligne, consulté le ).
- ↑ (en) Alan B. Tuck, Ann F. Chambers et Alison L. Allan, « Osteopontin overexpression in breast cancer: Knowledge gained and possible implications for clinical management », Journal of Cellular Biochemistry, vol. 102, no 4, , p. 859–868 (ISSN 0730-2312 et 1097-4644, DOI 10.1002/jcb.21520, lire en ligne, consulté le ).
- Thalmann G. N. Sikes R. A. Devoll R. E. Kiefer J. A. Markwalder R. Klima I. et al . (1999). Osteopontin: possible role in prostate cancer progression. Clin. Cancer Res.5, 2271–2277.
- ↑ (en) Georg F. Weber, Samy Ashkar, Melvin J. Glimcher et Harvey Cantor, « Receptor-Ligand Interaction Between CD44 and Osteopontin (Eta-1) », Science, vol. 271, no 5248, , p. 509–512 (ISSN 0036-8075 et 1095-9203, DOI 10.1126/science.271.5248.509, lire en ligne, consulté le ).
- (en) Y. U. Katagiri, J. Sleeman, H. Fujii, P. Herrlich, H. Hotta, K. Tanaka et al., « CD44 variants but not CD44s cooperate with beta1-containing integrins to permit cells to bind to osteopontin independently of arginine-glycine-aspartic acid, thereby stimulating cell motility and chemotaxis », Cancer Res., vol. 59, , p. 219–226 (PMID 9892210, lire en ligne).
- (en) Bhavik Desai, Michael J Rogers et Meenakshi A Chellaiah, « Mechanisms of osteopontin and CD44 as metastatic principles in prostate cancer cells », Molecular Cancer, vol. 6, no 1, (ISSN 1476-4598, PMID 17343740, PMCID 1828067, DOI 10.1186/1476-4598-6-18, lire en ligne, consulté le ).
- ↑ Aruffo A, Stamenkovic I, Melnick M, Underhill CB, Seed B, CD44 is the principal cell surface receptor for hyaluronate, Cell, 1990:61;1303-1313
- ↑ (en) P. Teder, RW Vandivier, D. Jiang et al., « Resolution of lung inflammation by CD44 », Science, vol. 296, no 5565, , p. 155-158 (lire en ligne).
- ↑ (en) Sebastian Müller, Fabien Sindikubwabo, Tatiana Cañeque, Anne Lafon, Antoine Versini, Bérangère Lombard, Damarys Loew, Ting-Di Wu, Christophe Ginestier, Emmanuelle Charafe-Jauffret, Adeline Durand, Céline Vallot, Sylvain Baulande, Nicolas Servant et Raphaël Rodriguez, « CD44 regulates epigenetic plasticity by mediating iron endocytosisv », Nature Chemistry, vol. 12, , p. 929–938 (PMID 32747755, lire en ligne).
- ↑ (en) Stéphanie Solier, Sebastian Müller, Cañeque Tatiana, Versini Antoine, Mansart Arnaud, Sindikubwabo Fabien, Baron Leeroy, Emam Laila, Gestraud Pierre, Pantoș G. Dan, Gandon Vincent, Gaillet Christine, Wu Ting-Di, Dingli Florent, Loew Damarys, Baulande Sylvain, Durand Sylvère, Sencio Valentin, Robil Cyril, Trottein François, Péricat David, Näser Emmanuelle, Cougoule Céline, Meunier Etienne, Bègue Anne-Laure, Salmon Hélène, Manel Nicolas, Puisieux Alain, Watson Sarah, Dawson Mark A., Servant Nicolas, Kroemer Guido, Annane Djillali et Rodriguez Raphaël, « A druggable copper-signalling pathway that drives inflammation », Nature, , p. 1-9 (PMID 37100912, DOI 10.1038/s41586-023-06017-4, lire en ligne).
- ↑ (en) B. L. Lokeshwar, V. B. Lokeshwar et N. L. Block, « Expression of CD44 in prostate cancer cells: association with cell proliferation and invasive potential. », Anticancer Res., vol. 15, , p. 1191–1198 (PMID 7544562, lire en ligne).
- ↑ (en) Lilly Y.W. Bourguignon, Patrick A. Singleton, Falko Diedrich et Robert Stern, « CD44 Interaction with Na+-H+ Exchanger (NHE1) Creates Acidic Microenvironments Leading to Hyaluronidase-2 and Cathepsin B Activation and Breast Tumor Cell Invasion », Journal of Biological Chemistry, vol. 279, no 26, , p. 26991–27007 (DOI 10.1074/jbc.M311838200, lire en ligne, consulté le ).
- ↑ (en) Meenakshi Chellaiah, Neil Kizer, Matthew Silva et Ulises Alvarez, « Gelsolin Deficiency Blocks Podosome Assembly and Produces Increased Bone Mass and Strength », The Journal of Cell Biology, vol. 148, no 4, , p. 665–678 (ISSN 0021-9525 et 1540-8140, PMID 10684249, PMCID 2169374, DOI 10.1083/jcb.148.4.665, lire en ligne, consulté le ).
- ↑ (en) Sinan Ekici, Ay¸Se Ayhan, Sezer Kendi et Haluk öZen, « Determination of Prognosis in Patients With Prostate Cancer Treated With Radical Prostatectomy: Prognostic Value of CD44v6 Score », Journal of Urology, vol. 167, no 5, , p. 2037–2041 (ISSN 0022-5347 et 1527-3792, DOI 10.1016/S0022-5347(05)65078-1, lire en ligne, consulté le ).
- (en) Rashmin C. Savani, Gaoyuan Cao, Patricia M. Pooler et Aisha Zaman, « Differential Involvement of the Hyaluronan (HA) Receptors CD44 and Receptor for HA-mediated Motility in Endothelial Cell Function and Angiogenesis », Journal of Biological Chemistry, vol. 276, no 39, , p. 36770–36778 (DOI 10.1074/jbc.M102273200, lire en ligne, consulté le ).
- (en) Gaoyuan Cao, Rashmin C. Savani, Melane Fehrenbach et Chris Lyons, « Involvement of Endothelial CD44 during in Vivo Angiogenesis », The American Journal of Pathology, vol. 169, no 1, , p. 325–336 (PMID 16816384, PMCID 1698758, DOI 10.2353/ajpath.2006.060206, lire en ligne, consulté le ).
- ↑ (en) E. D. Kalish, N. Iida, F. L. Moffat et L. Y. -date=1999 Bourguignon, « A new CD44V3-containing isoform is involved in tumor cell growth and migration during human breast carcinoma progression. », Frontiers in Bioscience-Landmark, vol. 4, no 1, , A1–A8 (DOI 10.2741/Kalish).
- ↑ (en) Jayne E. Draffin, Suzanne McFarlane, Ashleigh Hill et Patrick G. Johnston, « CD44 Potentiates the Adherence of Metastatic Prostate and Breast Cancer Cells to Bone Marrow Endothelial Cells », Cancer Research, vol. 64, no 16, , p. 5702–5711 (ISSN 0008-5472 et 1538-7445, DOI 10.1158/0008-5472.can-04-0389, lire en ligne, consulté le ).
- ↑ (en) Jayne E. Draffin, Suzanne McFarlane, Ashleigh Hill et Patrick G. Johnston, « CD44 Potentiates the Adherence of Metastatic Prostate and Breast Cancer Cells to Bone Marrow Endothelial Cells », Cancer Research, vol. 64, no 16, , p. 5702–5711 (ISSN 0008-5472 et 1538-7445, DOI 10.1158/0008-5472.CAN-04-0389, lire en ligne, consulté le ).
- (en) Suzanne McFarlane, Jonathan A. Coulter, Paul Tibbits et Anthony O'Grady, « CD44 increases the efficiency of distant metastasis of breast cancer », Oncotarget, vol. 6, no 13, , p. 11465–11476 (ISSN 1949-2553, PMID 25888636, PMCID 4484469, DOI 10.18632/oncotarget.3410, lire en ligne, consulté le ).
- ↑ (en) Yunhee Cho, Hyun-Woo Lee, Hyeok-Gu Kang et Hye-Young Kim, « Cleaved CD44 intracellular domain supports activation of stemness factors and promotes tumorigenesis of breast cancer », Oncotarget, vol. 6, no 11, , p. 8709–8721 (ISSN 1949-2553, PMID 25909162, PMCID 4496178, DOI 10.18632/oncotarget.3325, lire en ligne, consulté le ).
- ↑ (en) Aditi Gupta, Wei Cao et Meenakshi A Chellaiah, « Integrin αvβ3 and CD44 pathways in metastatic prostate cancer cells support osteoclastogenesis via a Runx2/Smad 5/receptor activator of NF-κB ligand signaling axis », Molecular Cancer, vol. 11, no 1, (ISSN 1476-4598, PMID 22966907, PMCID 3499378, DOI 10.1186/1476-4598-11-66, lire en ligne, consulté le ).
- ↑ (en) J Akech, J J Wixted, K Bedard et M van der Deen, « Runx2 association with progression of prostate cancer in patients: mechanisms mediating bone osteolysis and osteoblastic metastatic lesions », Oncogene, vol. 29, no 6, , p. 811–821 (ISSN 0950-9232 et 1476-5594, PMID 19915614, PMCID 2820596, DOI 10.1038/onc.2009.389, lire en ligne, consulté le ).
 Portail de la biologie cellulaire et moléculaire