Décidualisation
La décidualisation est la transformation de l'endomètre et de ses cellules ( fibroblastes du stroma endométrial et de cellules d'origine non sanguine venant de la moelle osseuse) déclenché par l'ovulation, un processus dépendant de la progestérone qui fait suite à une prolifération rapide dépendante des œstrogènes dans le but de préparer l'endomètre pour recevoir l’œuf issu de la fécondation.
Durant la fenêtre d’implantation qui commence 4 jours après l'ovulation, les fibroblastes se différencient en sous-populations fonctionnellement distinctes. Les cellules déciduales anti-inflammatoires, dépendantes de la progestérone, forment une matrice robuste qui accueille le l’œuf, tandis que d'autre cellules, résistantes à la progestérone, ont un profil inflammatoire. Pour remplir ces fonctions, chaque sous-population déciduale interagit avec des cellules de l’immunité innée : les cellules déciduales anti-inflammatoires s’associent aux cellules tueuses naturelles utérines pour éliminer les cellules résistantes à la progestérone, tandis que les cellules résistantes à la progestérone recrutent des neutrophiles et des macrophages.
La transformation réussie de l’endomètre après l'ovulation, apte à recevoir l’œuf, nécessite une action continue de la progestérone mais aussi la prédominance des cellules déciduales dépendantes de la progestérone sur les cellules déciduales résistantes à la progestérone, favorisée par le recrutement et la différenciation des lymphocytes NK circulantes et de progéniteurs déciduales dérivés de la moelle osseuse.
Des avancées majeures dans la compréhension de ce processus ont émergé d’une reconstitution simplifiée de la voie déciduale dans des cellules stromales endométriales primaires cultivées, à l’aide de la transcriptomique unicellulaire permettant de mieux comprendre les anomalies de la décidualisation responsables de fausses couches précoces.
Introduction
L' aptitude de l’endomètre humain à alterner les états et fonctions lors du cycle menstruel façon cyclique n’est partagée que par un petit nombre d’autres mammifères menstruants, notamment les primates supérieurs, certaines espèces de chauves-souris et la musaraigne-éléphant[1],[2]. Les mammifères menstruants partagent également plusieurs autres caractéristiques reproductives, telles une ovulation spontanée, un placenta hémochorial caractérisé par une invasion profonde des artères maternelles par le trophoblaste placentaire et la naissance d’un seul ou de deux descendants bien développés par grossesse[2]. En outre, trois caractéristiques distinctes distinguent l’endomètre non gravide des espèces menstruantes de celui des autres mammifères : une prolifération et une croissance tissulaire rapides, l’accumulation de lymphocytes tueurs naturels utérins et la décidualisation spontanée des cellules stromales[1].
La décidualisation des cellules stromales endométriales est un programme de différenciation en plusieurs étapes qui débute par une réponse aiguë au stress cellulaire, conservée au cours de l’évolution[3], et qui aboutit, après plusieurs jours, à l’émergence de cellules déciduales spécialisées[4],[5]. Au cours de la grossesse, les cellules déciduales coopèrent avec les cellules immunitaires locales pour former un tissu spécialisée permettant une invasion trophoblastique contrôlée et la formation du placenta[6],[7]. La décidualisation se produit chez toutes les espèces de mammifères dont l’implantation implique la rupture de l’épithélium endométrial luminal par le conceptus, mais l’ampleur de la réaction déciduale varie considérablement et est corrélée à la profondeur de l’invasion trophoblastique propre à chaque espèce[8].
Chez la plupart des mammifères, la décidualisation et l’accumulation des lymphocytes NK dépendent de signaux émis par l’embryon en cours d’implantation[9]. Toutefois, chez les espèces menstruantes, ces deux processus sont initiés à chaque cycle, indépendamment de la présence d’un embryon implanté[1],[2].
Ce passage d’un contrôle embryonnaire à un contrôle maternel du processus décidual explique non seulement l’évolution de la menstruation, mais confère également à l’endomètre un mécanisme robuste permettant de rejeter les embryons de faible qualité. Dans l’endomètre humain, la réponse initiale de stress déciduale coïncide avec l’ouverture de la fenêtre d’implantation, tandis que l’émergence de cellules déciduales morphologiquement différenciées, caractérisées par un cytoplasme abondant et des noyaux élargis, annonce la fermeture de la fenêtre d’implantation de quatre jours[4].
L’endomètre est souvent considéré comme un tissu effecteur exclusivement soumis aux variations de la production ovarienne d’œstrogènes et de progestérone et, par conséquent, capable de se reproduire à l’identique d’un cycle à l’autre. La découverte que la régénération endométriale et l’homéostasie tissulaire dépendent de manière cruciale de cellules progénitrices non hématopoïétiques dérivées de la moelle osseuse et de cellules de l’immunité innée a largement fait voler en éclats cette conception historique[10],[11],[12],[13],[14]. De plus, de nouvelles technologies, telles que le séquençage de l’ARN à l’échelle de la cellule unique et les modèles d’organoïdes endométriaux, révèlent comment la prolifération dépendante des œstrogènes durant la phase folliculaire contrôle la spécification des cellules épithéliales et stromales endométriales en différentes sous-populations dotées de fonctions distinctes après l’ovulation[5],[15],[16].
Origine de la décidualisation
Un mécanisme majeur à l’origine de la diversité reproductive chez les mammifères implique l’incorporation d’éléments transposables dans les séquences d’ADN régulatrices, conduisant à un remaniement des voies de transduction du signal et des facteurs de transcription) afin d’induire l’expression de nouveaux gènes. Contrairement aux gènes, les éléments transposables sont très variables et souvent spécifiques d’une espèce[17]. La colonisation des génomes des mammifères par MER20, un transposon d’ADN de type « couper-coller », a coïncidé avec l’émergence de la décidualisation et des placentas invasifs. Les éléments MER20 codent 13 % des amplificateurs des gènes ayant acquis une expression dans les cellules déciduales des mammifères euthériens (placentaires), y compris chez les primates supérieurs et l’être humain[18],[19]. L’apparition de la menstruation dans la lignée des primates s’est produite parallèlement à l’intégration génomique de rétrotransposons Alu renfermant un motif triple de liaison aux facteurs de transcription [20], indiquant que les éléments transposables ont également gouverné l’évolution de la décidualisation spontanée. Sur la base de la transcriptomique comparative, des centaines de gènes ont désormais été identifiés dans l’endomètre gravide comme ayant été gagnés ou perdus au cours des lignées des primates et de l’humain[21]. Des données récentes suggèrent que les gènes déciduales recrutés récemment dans la lignée humaine jouent un rôle disproportionné dans des troubles fréquents de la grossesse, notamment les pertes précoces de grossesse et la naissance prématurée [21].
Malgré ces adaptations génomiques, les cellules stromales endométriales humaines ne sont pas intrinsèquement capables de se différencier en cellules déciduales. La décidualisation spontanée en réponse aux signaux hormonaux est plutôt une propriété de l’endomètre qui apparaît à un moment donné après la ménarche. Par exemple, l’endomètre de la plupart des fœtus à terme et des nouveau-nés n’est que faiblement prolifératif, malgré une exposition prolongée in utero à des concentrations très élevées d’œstrogènes et de progestérone non liés. Bien que des modifications sécrétoires des glandes endométriales puissent être observées occasionnellement à la naissance, les changements déciduales ou menstruels sont rares[22]. Ces observations issues d’études post-mortem sont corroborées par le fait que les saignements utérins néonataux manifestes, définis comme des saignements de type menstruel déclenchés par une chute rapide des hormones sexuelles circulantes d’origine maternelle, ne concernent que 4 à 5 % des nouveau-nés de sexe féminin au cours de la première semaine de vie[23]. La sensibilité de l’endomètre à la progestérone s’établit après une croissance prolongée de l’utérus dépendante de l’estradiol, qui débute avant le développement mammaire chez les filles prépubères et se poursuit après la ménarche[24].
La dépendance de la décidualisation spontanée à l’hyperprolifération dépendante de l’estradiol est également manifeste dans l’organisation en couche de ce processus au sein de l’endomètre cyclique. Après les menstruations, la prolifération des cellules épithéliales glandulaires et stromales s’accélère à mesure que l’on s’éloigne de l’interface endomètre–myomètre et atteint un pic au dixième jour du cycle dans le tiers supérieur de la couche endométriale superficielle[25]. Cette réponse proliférative sélective a été associée à la présence d’agrégats lymphoïdes résidant dans la couche endométriale basale[26],[27],[28], qui sécrètent vraisemblablement de l’interféron gamma, un puissant inhibiteur des réponses aux hormones stéroïdiennes[29]. Ainsi, à mesure que l’endomètre croît au-delà du gradient local d’interféron gamma, la prolifération cellulaire s’accélère rapidement, imposant différents niveaux de stress réplicatif aux cellules individuelles. Après l’élévation post-ovulatoire des taux de progestérone, la prolifération des cellules épithéliales glandulaires diminue d’abord puis cesse complètement, en parallèle avec l’apparition des sécrétions glandulaires apocrines, annonçant le début de la fenêtre d’implantation de la phase lutéale[30]. Simultanément, les lymphocytes NK utérins s’accumulent, tandis que les cellules stromales à proximité de l’épithélium luminal sortent du cycle cellulaire et entament leur décidualisation[4]. Les péricytes entourant les artérioles spiralées terminales de la couche superficielle subissent également des modifications morphologiques caractéristiques d’une réponse déciduale. Les péricytes sont non seulement différents de leurs homologues stromaux sur les plans biophysique et métabolique[31],[32], mais ils produisent aussi des sécrétions, riches en chimiokines et cytokines impliquées dans la migration trophoblastique et l’invasion intravasculaire [33].
Cellules impliquées dans la décidualisation
La décidualisation est un processus triphasique qui débute par une réponse inflammatoire aiguë au stress, suivie d’une phase anti-inflammatoire, puis d’un second état inflammatoire irréversible. La réponse déciduale inflammatoire initiale correspond à la fenêtre d’implantation[4]. Au cours des cycles sans conception, la phase déciduale anti-inflammatoire qui s’ensuit est brève, car la diminution des taux de progestérone favorise une transition rapide vers l’état inflammatoire irréversible, lequel précède la menstruation[34]. En revanche, en cas d’implantation embryonnaire réussie, la phase déciduale anti-inflammatoire est considérablement prolongée et maintenue pendant une grande partie de la grossesse, bien que la décidua adopte finalement un état pro-inflammatoire avant l'accouchement[34],[35].
Des avancées majeures dans la compréhension de ce processus ont émergé d’une reconstitution simplifiée de la voie déciduale dans des cellules stromales endométriales primaires cultivées, à l’aide de la transcriptomique unicellulaire (8). Cette analyse a révélé que les cellules stromales en cours de différenciation subissent une reprogrammation transcriptionnelle étendue et coordonnée durant la phase déciduale inflammatoire initiale, déclenchée par l’augmentation de l’adénosine monophosphate cyclique intracellulaire et l’activation de facteurs de transcription spécifiques de la décidua, qui interagissent avec le récepteur de la progestérone lié à son ligand[36],[37],[38]. La reprogrammation transcriptionnelle des cellules stromales implique une réponse aiguë au stress cellulaire, qui débute par une production massive d’espèces réactives de l’oxygène et la sécrétion de médiateurs inflammatoires et d’alarmines nucléaires, notamment l’interleukine-33 et la protéine HMGB1 (high mobility group box 1)[10],[39],[40].
En parallèle, un remodelage global de la chromatine — incluant l’ouverture et la fermeture de nombreux loci d’ADN — permet aux facteurs de transcription déciduales d’accéder aux régions promotrices et aux séquences activatrices contrôlant l’expression de gènes spécifiques[41],[42],[43]. Les cellules traversant cette phase préparatoire sont désignées comme cellules pré-déciduales . La majorité des cellules reprogrammées évoluent vers des cellules pré-déciduales anti-inflammatoires dépendantes de la progestérone. Toutefois, la reprogrammation inflammatoire aggrave également les lésions de l’ADN déjà présentes dans les cellules stromales soumises à un stress réplicatif, donnant ainsi naissance à une population distincte de cellules déciduales sénescentes[5],[17].
Cellules déciduales anti-inflammatoires
Les cellules déciduales dépendantes de la progestérone se caractérisent par l’activation de mécanismes de défense cellulaire et par l’inhibition sélective des voies de signalisation sensibles au stress. En conséquence, les cellules déciduales dépendantes de la progestérone sont non seulement protégées contre le stress oxydatif et métabolique, mais également largement imperméables aux signaux environnementaux délétères. L’inhibition des voies de stress est aussi essentielle au maintien d’une signalisation continue de la progestérone dans les cellules déciduales dépendantes de la progestérone[44].
Grâce à des connexions intercellulaires étroites[45], les cellules déciduales dépendantes de la progestérone forment une matrice robuste qui, au cours de la grossesse, accueille le trophoblaste extravilleux envahissant ainsi que les populations locales de cellules immunitaires[6]. Bien que les produits de sécrétions déciduales soit en grande partie dépourvu de médiateurs inflammatoires, les cellules déciduales dépendantes de la progestérone produisent en abondance la chimiokine à motif C-X-C ligand 14 (CXCL14) et l’interleukine-15 , indispensables respectivement à la chimiotaxie et à l’activation des cellules tueuses naturelles utérines[5],[46]. À l’inverse, l’inactivation épigénétique d’autres chimiokines empêche l’infiltration de la matrice déciduale par des lymphocytes T cytotoxiques[47].
Cellules déciduales sénescentes
À pratiquement tous les égards, les cellules déciduales sénescentes constituent l’opposé fonctionnel des cellules déciduales dépendantes de la progestérone. La sénescence correspond à une réponse cellulaire au stress déclenchée par le raccourcissement des télomères et l’épuisement réplicatif, ainsi que par une multitude d’autres facteurs de stress provoquant des dommages macromoléculaires (61). L’activation des voies suppresseurs de tumeurs et la surexpression des inhibiteurs des kinases dépendantes des cyclines p16INK4a et p21CIP1 entraînent un arrêt permanent du cycle cellulaire, une résistance à l’apoptose et la production d’un phénotype sécrétoire associé à la sénescence[48]. La composition du phénotype sécrétoire associé à la sénescence est spécifique du tissu et comprend généralement des cytokines pro-inflammatoires et immunomodulatrices, des chimiokines, des modulateurs de croissance, des facteurs angiogéniques, ainsi que des protéines et des protéases de la matrice extracellulaire[48].
La sénescence aiguë, caractérisée par une production transitoire de phénotype sécrétoire associé à la sénescence et une élimination rapide des cellules sénescentes par le système immunitaire, est largement impliquée dans des processus de remodelage tissulaire physiologique, notamment au cours du développement fœtal, de la formation du placenta et de la cicatrisation des plaies[49],[50].
Dans l’endomètre, les cellules déciduales sénescentes se caractérisent par une capacité marquée à initier le remodelage tissulaire, médiée par un phénotype sécrétoire associé à la sénescence riche en protéines et protéases de la matrice extracellulaire, en modulateurs angiogéniques, en facteurs de croissance et en chimiokines impliquées dans la migration des neutrophiles[15]. Comparées aux cellules stromales non différenciées, les cellules déciduales sénescentes semblent particulièrement sensibles à la sénescence induite par effet de voisinage, c’est-à-dire qu’elles acquièrent un phénotype sénescent après une exposition prolongée au phénotype sécrétoire associé à la sénescence[10],[51],[52]. En l’absence d’une surveillance efficace par les cellules immunitaires, la sénescence cellulaire est susceptible de se propager à travers la couche endométriale superficielle vulnérable, rendant inévitable une dégradation tissulaire progressive et morcelée[53].
Cellules déciduales transitionnelles
La reconstitution expérimentale de la voie déciduale a révélé l’existence d’une troisième sous-population déciduale présentant des caractéristiques de transition mésenchymo-épithéliale[15]. Ces cellules, appelées cellules déciduales transitionnelles, sont hautement autonomes, c’est-à-dire largement dépourvues de récepteurs et de ligands médiants les interactions avec les autres sous-populations déciduales. Les cellules déciduales transitionnelles sont prédisposées à orchestrer la réparation tissulaire[15], ce qui concorde avec des données expérimentales montrant que la transition mésenchymo-épithéliale favorise la ré-épithélialisation de l’endomètre après les menstruations et la parturition[54],[55].
L’élimination pharmacologique des cellules stromales préalablement stressées dans des reconstitutions expérimentales atténue la réponse inflammatoire déciduale initiale, ce qui accélère massivement l’émergence des cellules déciduales dépendantes de la progestérone au détriment des cellules déciduales sénescentes et, dans une moindre mesure, des cellules déciduales transitionnelles[15]. Cette observation est déterminante, car elle démontre l’importance de l’hyperprolifération dépendante de l’estradiol et de l’épuisement réplicatif durant la phase proliférative dans la détermination de l’amplitude de la réponse inflammatoire pré-déciduale et de l’équilibre ultérieur entre les cellules déciduales dépendantes de la progestérone et le rapport cellules déciduales sénescentes/déciduales transitionnelles. Ainsi, les données in vitro suggèrent qu’après une prolifération rapide dépendante de l’estradiol, la trajectoire par défaut de la voie déciduale conduit inévitablement à la destruction et à la réparation tissulaires. Étant donné que les cellules déciduales dépendantes de la progestérone sont sensibles à la sénescence induite par effet de voisinage, elles ne peuvent échapper à ce destin que durant une fenêtre étroite, en mobilisant les cellules de l’immunité innée afin d’éliminer leurs homologues sénescentes[5].
Homéostasie endomètriale au cours de la phase lutéale

(A) Après les menstruations, la ré-épithélialisation rapide de l’endomètre vient soit une transformation de cellule conjonctive en cellule épithéliale, soit la prolifération de cellules épithéliales issus de zones non desquamées, ou une combinaison des deux. La prolifération dépendante des œstrogènes est sous le contrôle d’interféron généré par des agrégats lymphoïdes résidant à la jonction endomètre–myomètre.
(B) Panneau supérieur : au cours d’un cycle sans conception, la diminution des taux de progestérone favorise la prédominance des cellules déciduales sénescentes avec le retrait des lymphocytes NK, entraînent le recrutement leucocytaire et la dégradation menstruelle. Panneau inférieur : en cas d’implantation embryonnaire réussie, les cellules déciduales dépendantes de la progestérone(DeC) activent les cellules tueuses naturelles utérines (uNK) qui élimine rapidement des cellules déciduales sénescentes (senDeC) permettant la formation d'une zone sans inflammation
Les niveaux tissulaires d'adénosine monophosphate cyclique augmentent fortement dans l’endomètre à la suite de l’élévation post-ovulatoire des concentrations de progestérone[56] très probablement par la prostaglandine E2 comme signal déclenchant la décidualisation[57]. La prolifération des cellules épithéliales et stromales de la couche endométriale superficielle cesse et la différenciation s’amorce[58].
En parallèle, l'activité des marqueurs de la sénescence comme l’activité de la β-galactosidase associée à la sénescence augmente brutalement après l’ovulation et continue de s’élever lors de la progression de la phase lutéale précoce vers la phase lutéale tardive[10]. La transition de la phase proliférative à la phase sécrétoire coïncide également avec l’apparition d’autres marqueurs canoniques de la sénescence dans l’endomètre, notamment la perte de la lamine B1, l’induction du suppresseur de tumeur p53, de l’inhibiteur des kinases dépendantes des cyclines p16INK4a, ainsi que des modifications histoniques associées à la sénescence[10],[59]. Le profil des cellules sénescentes sont nettement plus abondantes dans l’épithélium luminal que dans l’épithélium glandulaire durant la fenêtre d’implantation. Dans le stroma, environ 1 % des cellules sont des cellules sénescentes (p16INK4a positif) en phase lutéale précoce. Leur abondance augmente transitoirement pendant la fenêtre d’implantation, puis s’élève beaucoup plus fortement dans l’endomètre prémenstruel[10].
L'évolution dans le temps des cellules p16INK4a positif dans l’endomètre souligne le rôle crucial d’une action progestative continue pour contenir la sénescence cellulaire assurée principalement par les cellules tueuses naturelles utérines, les cellules immunitaires les plus abondantes dans l’endomètre de phase lutéale et dans la décidua de la grossesse[10],[16],[60],[61]. Les cellules épithéliales glandulaires comme les cellules déciduales dépendantes de la progestérone sécrètent des chimiokines, en particulier CXCL14, impliquées dans le recrutement des lymphocytes NK circulantes vers l’endomètre[62],[63]. Cette chimiokine joue également un rôle important dans l’immunosurveillance des infections bactériennes et virales[64].
Une fois recrutées, les lymphocytes NK subissent une différenciation progressive, un processus contrôlé par les cellules déciduales dépendantes de la progestérone via la sécrétion d’interleukine-15[65]. La maturation des lymphocytes NK utérins se caractérise par l’acquisition séquentielle de récepteurs de type immunoglobuline des cellules tueuses (KIR) et de CD39 à la surface cellulaire. Les lymphocytes NK utérins immatures (KIR⁻CD39⁻) présentent une capacité proliférative élevée en réponse à l’interleukine-15, laquelle diminue avec l’augmentation du degré de maturité[65],[66]. Le sous-ensemble des lymphocytes NK utérins matures (KIR⁺CD39⁺) se distingue par une production accrue de granzyme A cytotoxique[65]. Des analyses unicellulaires ont confirmé la présence de trois sous-populations de lymphocytes NK utérins transcriptionnellement distinctes à la fois dans l’endomètre lutéal et à l’interface materno-fœtale au début de la grossesse[5],[7].
Expérimentalement, les lymphocytes NK utérins ciblent et éliminent les cellules déciduales sénescentes avec une précision et une efficacité remarquables[10],[60]. L’élimination des cellules déciduales sénescentes s’effectue principalement par exocytose de granules, un mécanisme par lequel les lymphocytes NK utérins s’engagent physiquement avec les cellules cibles et délivrent des granules cytolytiques contenant la perforine, le granzyme A et le granzyme B[10],[67]. Les mécanismes par lesquels les lymphocytes NK utérins ciblent sélectivement les cellules déciduales sénescentes ne sont pas entièrement élucidés, bien que des données expérimentales impliquent l’activation du récepteur KLRK1 (également connu sous le nom de NKG2D)[68]. Ce récepteur activateur des lymphocytes NK utérins se lie à des ligands induits par le stress présents à la surface des cellules stressées et sénescentes, appartenant aux familles MIC (MHC class I chain-related proteins) et ULBP (unique long 16 binding proteins)[69],[70]. Des métalloprotéinases du phénotype sécrétoire associé à la sénescence, telles qu’ADAM9, ADAM10 et ADAM17, peuvent cliver ces ligands induits par le stress à la surface cellulaire, permettant ainsi aux cellules sénescentes d’échapper à la reconnaissance immunitaire[71],[72]. Cependant, les cellules déciduales transitionnelles et les cellules déciduales bloquent efficacement ce mécanisme d’échappement en sécrétant en abondance du TIMP3 ( tissue inhibitor of metalloproteinase 3 ), un puissant inhibiteur des métalloprotéinases[73]. L’interleukine-15, CXCL14 et TIMP3 sont déjà fortement exprimés par les cellules déciduales transitionnelles pendant la fenêtre d’implantation, ce qui signifie que la surveillance immunitaire des cellules endommagées et sénescentes est opérationnelle.
Le partenariat entre les lymphocytes NK utérins et les cellules déciduales dépendantes de la progestérone dépend de manière critique d’une signalisation progestative continue, ce qui explique, au moins en partie, pourquoi l’endomètre bascule brutalement vers un état pro-inflammatoire avant les menstruations. En revanche, lors d’un cycle avec conception, la coopération soutenue lymphocytes NK utérins–Cellules déciduales dépendantes de la progestérone s’accompagne du recrutement de cellules progénitrices déciduales circulantes dérivées de la moelle osseuse[5],[11]. Les progéniteurs déciduales présents dans l’endomètre de phase lutéale sont des cellules prêtes à une expansion proliférative rapide en début de grossesse. Contrairement aux cellules stromales endométriales résidentes, ces progéniteurs déciduales expriment fortement le gène PRL, qui code la prolactine, marqueur déciduale in vitro[11],[74]. Ainsi, l’homéostasie endométriale lors de l’implantation embryonnaire interstitielle et la transformation ultérieure en décidua de grossesse dépendent de manière cruciale du recrutement réussi de cellules non utérines, à savoir des cellules NK circulantes et des cellules progénitrices mésenchymateuses non hématopoïétiques dérivées de la moelle osseuse[5],[10],[11],[74],[60].
Implantation : réceptivité et sélectivité endométriales
Le modèle classique de l’implantation
Il est largement admis que la rupture de l’épithélium endométrial de surface (luminal) par le blastocyste constitue l’étape critique et limitante de l’implantation humaine. Ce modèle de l’implantation, fondé sur des études menées chez la souris et d’autres modèles animaux[75],[76],[77], postule que l’épithélium luminal est une barrière robuste n’exprimant que transitoirement les mécanismes nécessaires à l’apposition, à l’adhésion et à l’invasion embryonnaires. Autrement dit, des modifications transitoires de l’épithélium luminal seraient censées définir les limites de la fenêtre d’implantation. Un problème potentiel de ce paradigme est qu’il occulte des différences interspécifiques marquées ainsi que des contraintes reproductives distinctes. Les souris sont des mammifères à portées multiples, et la fonction de barrière de l’épithélium luminal est essentielle à l’implantation synchronisée de plusieurs blastocystes. Les embryons murins présents dans la cavité utérine peuvent entrer temporairement en arrêt de développement (diapause) dans l’attente d’un pic transitoire d’œstrogènes circulants, qui rend simultanément l’endomètre réceptif et réactive les embryons dormants en vue de l’implantation[78]. Les concentrations d’œstrogènes augmentent également de façon transitoire au cours de la phase mid-lutéale du cycle menstruel, mais rien n’indique que cette élévation serve de signal de nidation chez l’humain.
Contrairement à la souris, la conception humaine implique un blastocyste unique, souvent porteur d’anomalies chromosomiques complexes et dépourvu de la capacité d’entrer en diapause[79],[80]. De plus, l’épithélium luminal durant la phase d'implantation se présente comme une mosaïque de cellules épithéliales p16INK4a+ et négatives[10]. Bien que cela reste à démontrer expérimentalement, les cellules épithéliales sénescentes p16INK4a+ pourraient plausiblement créer des zones offrant peu ou pas de résistance à l’implantation embryonnaire. Il est notable que l’apposition et l’attachement des blastocystes à l’épithélium luminal aient été observés chez de nombreuses espèces, alors que des preuves histologiques de ce stade d’implantation n’ont pas encore été documentées chez l’humain[81]. Ll’épithélium luminal médie l’absorption du fluide utérin dépendante de la progestérone[82],[83], un mécanisme essentiel à la « fermeture » de la cavité utérine pendant la fenêtre d’implantation[84]. En co-cultures, le contact entre des blastocystes humains et des cellules épithéliales endométriales induit une réponse transcriptionnelle embryonnaire susceptible de favoriser la poursuite de l’implantation[85].
Parmi les primates, seuls l’humain et les grands singes présentent une implantation interstitielle primaire, dans laquelle l’ensemble du conceptus est attiré à l’intérieur de l’endomètre[81]. Plutôt que de refléter une invasivité intrinsèque de l’embryon, l’implantation interstitielle profonde dépend d’une migration active des cellules pré-déciduales et de l’encapsulation du blastocyte[86],[87]. Dans des expériences de co-culture en 2D et en 3D, les cellules pré-déciduales migratrices s’orientent d’abord vers le trophoectoderme polaire, s’y attachent, puis « entraînent » le blastocyte dans la matrice stromale[87],[15]. Ce processus est remarquable à plusieurs égards. Premièrement, il est strictement dépendant du temps, car la différenciation ultérieure des cellules pré-déciduales en cellules déciduales entraîne une perte complète de la migration dirigée et de l’attachement au blastocyte. Extrapolées à la situation in vivo, ces observations indiquent qu’une absence de cellules déciduales sénescentes — qui accélère l’émergence des cellules déciduales — pourrait conduire à l’emprisonnement du conceptus dans une matrice largement statique et à un échec d’implantation[15],[88]. Deuxièmement, les embryons humains de haute qualité stimulent la migration des cellules pré-déciduales, tandis que les embryons de faible qualité échouent à le faire. Inversement, la migration des cellules stromales indifférenciées est activement inhibée par des embryons de haute qualité, mais pas par des embryons de faible qualité[87],[89],[90].
Biosurveillance et sélection embryonnaire
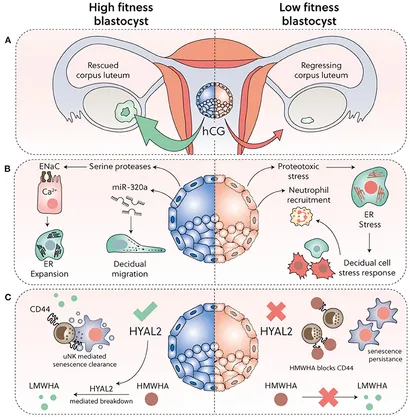
S’il est désormais de plus en plus incontestable que la décidualisation spontanée confère à l’endomètre la capacité de décoder des signaux reflétant la qualité embryonnaire , la manière dont ce processus conduit à l’élimination, de type menstruel, des embryons présentant un développement compromis demeure moins évidente[91],[92]. De toute évidence, si le conceptus ne sécrète pas des quantités suffisantes de gonadotrophine chorionique humaine, le corps jaune régresse et la chute des taux de progestérone déclenche la dégradation endométriale . Toutefois, plusieurs études de cohortes prospectives menées chez de jeunes femmes en bonne santé ont montré qu’environ 30 % des grossesses échouent après une élévation initiale des taux d’hormone chorionique gonadotrope humaine[93],[94],[95],[96]. La majorité de ces échecs surviennent peu après l’implantation et passent donc inaperçus.
Dans un nombre substantiel de pertes de grossesse très précoces, les concentrations d’hormone chorionique gonadotrope humaine ne s’écartent de celles observées dans les grossesses évolutives normales qu’au moment où la fausse couche est déjà en cours[97], ce qui suggère l’activation d’un mécanisme alternatif de dégradation tissulaire. Une étude récente a mis en évidence que les signaux de qualité embryonnaire modulent la capacité des lymphocytes tueuses naturelles utérines à cibler et éliminer les cellules déciduales sénescentes[60]. La perte de production embryonnaire de l’hyaluronidase 2 a été identifiée comme responsable de cette inhibition des lymphocytes tueuses naturelles utérines. La hyaluronidase 2 clive l’acide hyaluronique de haut poids moléculaire en acide hyaluronique de faible poids moléculaire[98],[99].
L’acide hyaluronique, un glycosaminoglycane ubiquitaire de la matrice extracellulaire , exerce des effets biologiques distincts selon son poids moléculaire. Dans les embryons préimplantatoires, une forte activité de la hyaluronidase 2 et la production d'acide hyaluronique de faible poids moléculaire favorisent le développement embryonnaire, tandis que le l’acide hyaluronique de haut poids moléculaire exerce un effet inverse[99]. Après l’implantation, la liaison de l’acide hyaluronique de haut poids moléculaire au récepteur CD44 exprimé à la surface des lymphocytes tueuses naturelles utérines abolit l’élimination ciblée des cellules déciduales sénescentes, alors que l’acide hyaluronique de haut poids moléculaire n’exerce aucun effet inhibiteur. L’ajout de hyaluronidase 2 recombinante au milieu conditionné de blastocystes humains de faible qualité s’est révélé suffisant pour restaurer l’élimination des cellules déciduales sénescentes médiées par les lymphocytes tueuses naturelles utérines, du moins in vitro[60]. Par ailleurs, l’hormone gonadotrophine chorionique humaine favorise la prolifération des lymphocytes tueuses naturelles utérines[100], ce qui renforce vraisemblablement la surveillance immunitaire des cellules déciduales sénescentes lors des cycles avec conception.
Dégradation et réparation endométriales
Au cours des cycles sans conception, la diminution des taux de progestérone met fin à la coopération entre les cellules déciduales et les cellules tueuses naturelles utérines, orientant ainsi la voie déciduale vers les cellules déciduales sénescentes et les cellules déciduales transitionnelles, impliquées respectivement dans la dégradation et la réparation tissulaires. Les cellules sénescentes recrutent également des cellules de l’immunité innée, principalement les neutrophiles et les macrophages, dont l’activation et la dégranulation renforcent la sénescence cellulaire et la dégradation de la matrice extracellulaire[101],[102]. Les embryons de faible qualité perturbent eux aussi les interactions entre lymphocytes NK et les cellules déciduales, orchestrant ainsi leur propre élimination en déclenchant une dégradation de type menstruel . Ainsi, un basculement de l’état déciduale vers les cellules déciduales sénescentes et les cellules déciduales transitionnelles pourrait constituer la voie commune sous-jacente à la dégradation et à la réparation tissulaires observées lors des menstruations et des pertes de grossesse précoces.
Pendant les menstruations, des zones d’endomètre desquamé coexistent avec des zones de tissu intact et réparé[103],[53]. Une desquamation menstruelle progressive, par fragments, réduit le risque d’infection et d’hémorragie excessive, bien qu’une réparation rapide de l’épithélium luminal demeure essentielle[101]. Le mécanisme à l’origine de la ré-épithélialisation de l’endomètre pendant les menstruations reste toutefois débattu. Sur la base d’études en microscopie électronique à balayage,, la ré-épithélialisation a initialement été attribuée à la prolifération ou à la migration de cellules épithéliales issues de segments glandulaires exposés dans la couche basale ou de résidus épithéliaux intacts situés près des régions cornuale et isthmique de l’utérus[53] . Des études ultérieures ont remis en cause cette interprétation, aucune preuve de prolifération cellulaire n’ayant été observée lors de la réparation menstruelle[104]. La ré-épithélialisation serait principalement assurée par la différenciation de cellules stromales via une transition mésenchymo-épithéliale[103],[104]. Bien entendu, ces deux mécanismes ne sont pas mutuellement exclusifs.
Fait intéressant, une exposition transitoire — mais non prolongée — au phénotype sécrétoire associé à la sénescence favorise le rajeunissement tissulaire en reprogrammant des cellules engagées vers un état de type cellule souche[105]. Ces observations soulèvent la possibilité intrigante que la sénescence prémenstruelle détermine le potentiel régénératif de la couche basale après les menstruations.
Le mécanisme qui protège la couche basale régénérative de la desquamation menstruelle n’est pas entièrement élucidé, mais il reflète vraisemblablement l’absence de réponses hormonales dans cette couche.
Dyshoméostasie déciduale et fausses couches à répétition
Le risque de récidive de fausse couche
La fausse couche à répétition est un trouble dévastateur et constitue un facteur sentinelle de risque de complications obstétricales lors des grossesses ultérieures[106]. Environ 15 % de toutes les grossesses cliniquement reconnues se soldent par une fausse couche, le plus souvent avant 12 semaines de gestation. La prévalence, dans la population générale, des femmes ayant respectivement une, deux, ou trois fausses couches ou plus est de 10,8 %, 1,9 % et 0,7 %. Outre le traumatisme physique (douleur, saignements et infection), chaque fausse couche accroît le risque de morbidité psychologique significative (dépression, trouble de stress post-traumatique et suicide) ainsi que de complications obstétricales lors d’une grossesse ultérieure évolutive (prématurité, retard de croissance fœtale, décollement placentaire et mort fœtale in utero)[106].
Deux facteurs de risque indépendants — l’âge maternel et le nombre de pertes de grossesse antérieures — exercent des effets disproportionnés sur les taux de fausses couches[107],[108]. Le risque lié à l’âge est dû aux erreurs méiotiques des ovocytes conduisant à des aneuploïdies fœtales et augmente fortement après l’âge de 34 ans. L’absence de variation géographique ou liée à l’ascendance indique que ce risque lié à l’âge est « câblé » dans la reproduction humaine[109]. Les taux de fausse couche augmentent également de façon progressive d’environ 10 % à chaque perte supplémentaire[107],[108]. Ce risque de récidive est indépendant de l’âge et n’est donc pas imputable à des anomalies chromosomiques. À ce jour, aucune donnée épidémiologique n’indique que le risque de récidive des fausses couches ait changé au cours des dernières décennies, ni qu’il diffère substantiellement entre populations[110],[111],[112]. Ainsi, à l’instar du risque lié à l’âge, le risque de récidive pourrait lui aussi être ancré dans un processus (physio-)pathologique fondamental, vraisemblablement déclenché par la fausse couche elle-même.
Sur le plan clinique, la fausse couche à répétition est définie par un nombre arbitraire de pertes de grossesse antérieures, consécutives ou non[106],[113]. Il n’existe pas de consensus sur des critères précis, bien que l’American Society for Reproductive Medicine et l’European Society of Human Reproduction and Embryology définissent désormais la fausse couche à répétition comme deux pertes de grossesse antérieures. Les pertes n’ont pas besoin d’être consécutives, mais la définition de l’European Society of Human Reproduction and Embryology inclut les pertes précliniques (biochimiques), contrairement à celle de l’American Society for Reproductive Medicine[106]. Il est important de souligner qu’il n’existe aucune justification physiopathologique à ces définitions, puisque le risque de fausse couche augmente de manière progressive, même après une seule perte, chez les femmes de tous âges[107],[108],[110],[111]. En outre, des définitions arbitraires de la fausse couche à répétition augmentent le risque d’amalgamer, sous une même entité pathologique, des patientes présentant des pronostics très différents. Par exemple, après deux pertes de grossesse consécutives, les patientes âgées de 30 et de 40 ans auront respectivement environ 80 % et 53 % de probabilité d’aboutir à une grossesse ultérieure réussie[107]. Ainsi, même dans cette tranche d’âge, il est plus probable qu’improbable qu’une grossesse suivante soit couronnée de succès chez ces patientes, bien que les femmes de 40 ans doivent également composer avec une fertilité réduite. En revanche, après cinq pertes consécutives, la probabilité qu’une grossesse aboutisse à une naissance vivante chute à environ 55 % et 25 % chez les femmes âgées respectivement de 30 et 40 ans[107]. Par conséquent, les définitions binaires de la fausse couche à répétition constituent un facteur de confusion majeur dans la recherche et les essais cliniques, car la probabilité de succès reproductif et l’efficacité des interventions thérapeutiques diffèrent fortement selon les populations étudiées[114].
Il est d’usage courant d’attribuer le risque de récidive des fausses couches à une multitude de troubles subcliniques, allant de perturbations discrètes de la coagulation, endocriniennes ou immunologiques à des carences vitaminiques et à des facteurs liés au mode de vie. En dehors du soutien progestatif, ce paradigme pathologique n’a pas permis de mettre au point des interventions efficaces pour prévenir les fausses couches, malgré des décennies de recherche et de nombreux essais cliniques[113],[114],[115],[116]. En outre, deux grandes études de cohorte n’ont rapporté aucune différence dans la probabilité d’une grossesse évolutive entre les femmes présentant des fausses couches à répétition dites « expliquées » et celles dites « inexpliquées » (« idiopathiques »)[117],[118]. La conception historique selon laquelle la grossesse précoce représenterait un état physiologique exceptionnellement fragile, facilement perturbé par des « déséquilibres » qui, en dehors de la grossesse, n’affecteraient pas de manière manifeste la santé et le bien-être[119]. Cette conception historique ne permet ni d’expliquer les taux cumulés élevés de naissances vivantes chez les patientes ayant des antécédents de fausse couche, ni de le concilier aisément avec le fait indiscutable que nos ancêtres, sur des millénaires, se sont reproduits avec succès malgré des environnements plus hostiles et des conditions sanitaires plus précaires. Bien entendu, des maladies avérées, telles qu’un diabète non contrôlé, peuvent provoquer des pertes de grossesse précoces, mais ces cas restent rares. Il existe bien entendu que certains facteurs de risque, comme l’obésité, ont un impact défavorable sur le pronostic des patientes en aggravant la physiopathologie sous-jacente[106],[113],[120].
L’endomètre péri-implantatoire dans les fausses couches à répétition
Pendant longtemps , la biologie de l’implantation a suscité peu d’attention dans le contexte des fausses couches à répétition. La découverte que la nidation est étroitement contrôlée par des sous-populations déciduales aux fonctions opposées, sous le contrôle homéostatique de cellules immunitaires innées extra-utérines et de progéniteurs déciduales dérivés de la moelle osseuse, ouvre une nouvelle dimension de la maladie. Les fausses couches à répétition sont associées à une perte de clonogénicité dans l’endomètre de la phase de nidation[121], reflétant un déficit en cellules déciduales[11]. Sur la base de modèles computationnels, il est prévu que les progéniteurs déciduales donnent naissance, en début de grossesse, à une sous-population cellulaire distincte localisée dans la couche compacte superficielle de la décidua (decidua compacta), qui correspond au site initial de l’invasion trophoblastique[11]. Fait important, le degré d’épuisement des cellules souches dans l’endomètre mid-lutéal est inversement corrélé au nombre de pertes de grossesse antérieures et, par conséquent, au risque de récidive de fausse couche[122].
Plusieurs études se sont intéressées à l’abondance des lymphocytes tueuses naturelles utérines dans l’endomètre de phase lutéale chez les patientes présentant des fausses couches à répétition[123], généralement motivées par l’hypothèse discutable selon laquelle des niveaux élevés traduiraient une attaque immunitaire imminente contre le conceptus semi-allogénique[124]. Toutefois, l’abondance des lymphocytes tueuses naturelles utérines varie naturellement au cours de la phase lutéale et d’un cycle à l’autre[10], ce qui est parfaitement cohérent avec le rôle homéostatique de ces cellules immunitaires innées. L’absence de protocoles standardisés et le défaut de normalisation des niveaux des lymphocytes tueuses naturelles utérines en fonction du jour du cycle contribuent également aux résultats discordants rapportés dans la littérature[123]. Néanmoins, des données indiquent que des niveaux et une activité réduits des lymphocytes tueuses naturelles utérines dans l’endomètre, ainsi que dans le sang périphérique, sont associés à des taux plus élevés de fausses couches[5],[125],[126],[127].
Dans leur ensemble, ces observations suggèrent que les mécanismes homéostatiques clés régulant la transformation de l’endomètre cyclique en décidua de grossesse sont relâchés chez les patientes présentant des fausses couches à répétition. Cette perte de rigueur est susceptible d’augmenter la probabilité d’implantation embryonnaire dans un endomètre destiné à se dégrader en début de grossesse et, par extension, le risque de récidive de fausse couche. À titre d’exemple, l’obésité a un impact défavorable sur les progéniteurs déciduales de l’endomètre péri-implantatoire, comme en témoigne la corrélation inverse significative entre l’augmentation de l’indice de masse corporelle et le niveau de cellules endométriales clonogènes[128]. L’obésité est en outre associée à une diminution et à une dysfonction des lymphocytes tueuses naturelles utérines au cours de la grossesse[129], ce qui pourrait expliquer pourquoi elle constitue un facteur de risque majeur de fausses couches à répétition d’ordre élevé[130].
Les perturbations de l’endomètre péri-implantatoire pourraient être exploitées pour identifier des biomarqueurs cliniquement utiles permettant de dépister, avant la grossesse, les femmes présentant un risque accru de fausse couche. De tels biomarqueurs pourraient également servir à évaluer des interventions pré-conceptionnelles visant à optimiser l’environnement utérin d’implantation. L’évaluation précise de la clonogénicité endométriale est possible mais contraignante, car elle repose sur des tests de formation de colonies nécessitant dix jours[5],[33],[131]. La mesure des niveaux des lymphocytes tueuses naturelles utérines est également délicate en raison des variations intrinsèques intra- et inter-cycles[10]. Une approche alternative consiste à mesurer l’abondance relative des différentes sous-populations déciduales dans des biopsies mid-lutéales.
Un signe précoce de cellules stromales destinées à entrer en sénescence au cours de la grossesse est l’absence ou la perte de sensibilité à la progestérone, définie ici par l’expression de gènes normalement fortement réprimés par la progestérone. Par exemple, la progestérone réprime puissamment DIO2, un gène spécifique des cellules stromales de l’endomètre qui code la désiodinase de l’iodothyronine de type 2, enzyme catalysant la conversion de la thyroxine (T4) en hormone thyroïdienne bioactive (T3) (8). L’expression de DIO2 est élevée durant la phase proliférative et la phase sécrétoire tardive, c’est-à-dire lorsque les niveaux de progestérone sont faibles et que les cellules stromales sont hautement actives sur le plan métabolique. SCARA5, qui code le récepteur de la ferritine, est un gène stromal spécifique et sensible à la progestérone[5]. Sans surprise, le profil temporel d’expression de SCARA5 au cours du cycle menstruel est inverse de celui de DIO2. Étant donné qu’une cellule ne peut être simultanément sensible et résistante à la progestérone, SCARA5 et DIO2 marquent a priori des sous-populations stromales distinctes dans l’endomètre péri-implantatoire. Fait notable, les pertes de grossesse à répétition sont associées à une fréquence accrue de cycles caractérisés par une faible expression de SCARA5 et une expression élevée de DIO2 dans les biopsies faites durent la fenêtre d'implantation[5], indiquant qu’un déficit en cellules déciduales sensibles à la progestérone au moment de l’implantation prédispose à une dégradation médiée par la sénescence de l’interface placenta-déciduale au cours de la grossesse. En accord avec cette hypothèse, une étude récente de transcriptomique unicellulaire a mis en évidence une signature génique fortement associée à la sénescence dans les cellules stromales et déciduales à l’interface materno-fœtale lors du diagnostic de fausse couche sans expulsion immédiate (missed miscarriage)[132], suggérant que la sénescence déciduale précède la désintégration physique de la grossesse.
Références
- (en) Laura Catalini et Jens Fedder, « Characteristics of the endometrium in menstruating species: lessons learned from the animal kingdom† », Biology of Reproduction, vol. 102, no 6, , p. 1160–1169 (ISSN 0006-3363 et 1529-7268, PMID 32129461, PMCID 7253787, DOI 10.1093/biolre/ioaa029, lire en ligne, consulté le )
- (en) Deena Emera, Roberto Romero et Günter Wagner, « The evolution of menstruation: A new model for genetic assimilation: Explaining molecular origins of maternal responses to fetal invasiveness », BioEssays, vol. 34, no 1, , p. 26–35 (ISSN 0265-9247 et 1521-1878, PMID 22057551, PMCID 3528014, DOI 10.1002/bies.201100099, lire en ligne, consulté le )
- ↑ (en) Eric M. Erkenbrack, Jamie D. Maziarz, Oliver W. Griffith et Cong Liang, « The mammalian decidual cell evolved from a cellular stress response », PLOS Biology, vol. 16, no 8, , e2005594 (ISSN 1545-7885, PMID 30142145, PMCID 6108454, DOI 10.1371/journal.pbio.2005594, lire en ligne, consulté le )
- (en) Birgit Gellersen et Jan J. Brosens, « Cyclic Decidualization of the Human Endometrium in Reproductive Health and Failure », Endocrine Reviews, vol. 35, no 6, , p. 851–905 (ISSN 0163-769X et 1945-7189, DOI 10.1210/er.2014-1045, lire en ligne, consulté le )
- (en) Emma S. Lucas, Pavle Vrljicak, Joanne Muter et Maria M. Diniz-da-Costa, « Recurrent pregnancy loss is associated with a pro-senescent decidual response during the peri-implantation window », Communications Biology, vol. 3, no 1, (ISSN 2399-3642, PMID 31965050, PMCID 6972755, DOI 10.1038/s42003-020-0763-1, lire en ligne, consulté le )
- (en) John D. Aplin, Jenny E. Myers, Kate Timms et Melissa Westwood, « Tracking placental development in health and disease », Nature Reviews Endocrinology, vol. 16, no 9, , p. 479–494 (ISSN 1759-5029 et 1759-5037, DOI 10.1038/s41574-020-0372-6, lire en ligne, consulté le )
- (en) Roser Vento-Tormo, Mirjana Efremova, Rachel A. Botting et Margherita Y. Turco, « Single-cell reconstruction of the early maternal–fetal interface in humans », Nature, vol. 563, no 7731, , p. 347–353 (ISSN 0028-0836 et 1476-4687, PMID 30429548, PMCID 7612850, DOI 10.1038/s41586-018-0698-6, lire en ligne, consulté le )
- ↑ (en) Jan J. Brosens, Robert Pijnenborg et Ivo A. Brosens, « The myometrial junctional zone spiral arteries in normal and abnormal pregnancies », American Journal of Obstetrics and Gynecology, vol. 187, no 5, , p. 1416–1423 (DOI 10.1067/mob.2002.127305, lire en ligne, consulté le )
- ↑ (en) B. Anne Croy, Marianne J. Van Den Heuvel, Angela M. Borzychowski et Chandrakant Tayade, « Uterine natural killer cells: a specialized differentiation regulated by ovarian hormones », Immunological Reviews, vol. 214, no 1, , p. 161–185 (ISSN 0105-2896 et 1600-065X, DOI 10.1111/j.1600-065X.2006.00447.x, lire en ligne, consulté le )
- (en) Paul J Brighton, Yojiro Maruyama, Katherine Fishwick et Pavle Vrljicak, « Clearance of senescent decidual cells by uterine natural killer cells in cycling human endometrium », eLife, vol. 6, (ISSN 2050-084X, DOI 10.7554/eLife.31274, lire en ligne, consulté le )
- (en) Maria Diniz-da-Costa, Chow-Seng Kong, Katherine J. Fishwick et Thomas Rawlings, « Characterization of Highly Proliferative Decidual Precursor Cells During the Window of Implantation in Human Endometrium », Stem Cells, vol. 39, no 8, , p. 1067–1080 (ISSN 1066-5099 et 1549-4918, DOI 10.1002/stem.3367, lire en ligne, consulté le )
- ↑ (en) Hongling Du et Hugh S. Taylor, « Contribution of Bone Marrow-Derived Stem Cells to Endometrium and Endometriosis », Stem Cells, vol. 25, no 8, , p. 2082–2086 (ISSN 1066-5099 et 1549-4918, DOI 10.1634/stemcells.2006-0828, lire en ligne, consulté le )
- ↑ (en) Reshef Tal, Shafiq Shaikh, Pallavi Pallavi et Aya Tal, « Adult bone marrow progenitors become decidual cells and contribute to embryo implantation and pregnancy », PLOS Biology, vol. 17, no 9, , e3000421 (ISSN 1545-7885, PMID 31513564, PMCID 6742226, DOI 10.1371/journal.pbio.3000421, lire en ligne, consulté le )
- ↑ (en) Hugh S. Taylor, « Endometrial Cells Derived From Donor Stem Cells in Bone Marrow Transplant Recipients », JAMA, vol. 292, no 1, , p. 81 (ISSN 0098-7484, DOI 10.1001/jama.292.1.81, lire en ligne, consulté le )
- (en) Thomas M Rawlings, Komal Makwana, Deborah M Taylor et Matteo A Molè, « Modelling the impact of decidual senescence on embryo implantation in human endometrial assembloids », eLife, vol. 10, (ISSN 2050-084X, DOI 10.7554/eLife.69603, lire en ligne, consulté le )
- (en) Wanxin Wang, Felipe Vilella, Pilar Alama et Inmaculada Moreno, « Single-cell transcriptomic atlas of the human endometrium during the menstrual cycle », Nature Medicine, vol. 26, no 10, , p. 1644–1653 (ISSN 1078-8956 et 1546-170X, DOI 10.1038/s41591-020-1040-z, lire en ligne, consulté le )
- (en) Anna D. Senft et Todd S. Macfarlan, « Transposable elements shape the evolution of mammalian development », Nature Reviews Genetics, vol. 22, no 11, , p. 691–711 (ISSN 1471-0056 et 1471-0064, DOI 10.1038/s41576-021-00385-1, lire en ligne, consulté le )
- ↑ (en) Vincent J Lynch, Robert D Leclerc, Gemma May et Günter P Wagner, « Transposon-mediated rewiring of gene regulatory networks contributed to the evolution of pregnancy in mammals », Nature Genetics, vol. 43, no 11, , p. 1154–1159 (ISSN 1061-4036 et 1546-1718, DOI 10.1038/ng.917, lire en ligne, consulté le )
- ↑ (en) Vincent J. Lynch, Mauris C. Nnamani, Aurélie Kapusta et Kathryn Brayer, « Ancient Transposable Elements Transformed the Uterine Regulatory Landscape and Transcriptome during the Evolution of Mammalian Pregnancy », Cell Reports, vol. 10, no 4, , p. 551–561 (PMID 25640180, PMCID 4447085, DOI 10.1016/j.celrep.2014.12.052, lire en ligne, consulté le )
- ↑ (en) Pavle Vrljicak, Emma S. Lucas, Lauren Lansdowne et Raffaella Lucciola, « Analysis of chromatin accessibility in decidualizing human endometrial stromal cells », The FASEB Journal, vol. 32, no 5, , p. 2467–2477 (ISSN 1530-6860, PMID 29259032, PMCID 6040682, DOI 10.1096/fj.201701098R, lire en ligne, consulté le )
- Katelyn Mika, Mirna Marinić, Manvendra Singh, Joanne Muter, Jan Joris Brosens, Vincent J Lynch (2021) Evolutionary transcriptomics implicates new genes and pathways in human pregnancy and adverse pregnancy outcomes https://doi.org/10.7554/eLife.69584
- ↑ (en) William B. Ober et Jay Bernstein, « OBSERVATIONS ON THE ENDOMETRIUM AND OVARY IN THE NEWBORN », Pediatrics, vol. 16, no 4, , p. 445–460 (ISSN 0031-4005 et 1098-4275, DOI 10.1542/peds.16.4.445, lire en ligne, consulté le )
- ↑ (en) I. Brosens, A. Ćurčić, T. Vejnović et C.E. Gargett, « The perinatal origins of major reproductive disorders in the adolescent: Research avenues », Placenta, vol. 36, no 4, , p. 341–344 (DOI 10.1016/j.placenta.2015.01.003, lire en ligne, consulté le )
- ↑ (en) Marwan Habiba, Rosemarie Heyn, Paola Bianchi et Ivo Brosens, « The development of the human uterus: morphogenesis to menarche », Human Reproduction Update, vol. 27, no 1, , p. 1–26 (ISSN 1355-4786 et 1460-2369, DOI 10.1093/humupd/dmaa036, lire en ligne, consulté le )
- ↑ (en) Alex Ferenczy, Gracia Bertrand et Morrie M. Gelfand, « Proliferation kinetics of human endometrium during the normal menstrual cycle », American Journal of Obstetrics and Gynecology, vol. 133, no 8, , p. 859–867 (DOI 10.1016/0002-9378(79)90302-8, lire en ligne, consulté le )
- ↑ (en) Mark Christian, Petros Marangos, Ian Mak et John McVey, « Interferon-γ Modulates Prolactin and Tissue Factor Expression in Differentiating Human Endometrial Stromal Cells 1 », Endocrinology, vol. 142, no 7, , p. 3142–3151 (ISSN 0013-7227 et 1945-7170, DOI 10.1210/endo.142.7.8231, lire en ligne, consulté le )
- ↑ (en) S. Tabibzadeh, « Induction of HLA-DR Expression in Endometrial Epithelial Cells by Endometrial T-Cells: Potential Regulatory Role of Endometrial T-Cells in Vivo », The Journal of Clinical Endocrinology & Metabolism, vol. 73, no 6, , p. 1352–1359 (ISSN 0021-972X et 1945-7197, DOI 10.1210/jcem-73-6-1352, lire en ligne, consulté le )
- ↑ (en) S. Tabibzadeh, X.Z. Sun, Q.F. Kong et G. Kasnic, « Induction of a polarized micro-environment by human T cells and interferon-gamma in three-dimensional spheroid cultures of human endometrial epithelial cells », Human Reproduction, vol. 8, no 2, , p. 182–192 (ISSN 1460-2350 et 0268-1161, DOI 10.1093/oxfordjournals.humrep.a138020, lire en ligne, consulté le )
- ↑ (en) Georgia Zoumpoulidou, Marius C. Jones, Silvia Fernandez de Mattos et Julia M. Francis, « Convergence of Interferon-γ and Progesterone Signaling Pathways in Human Endometrium: Role of PIASy (Protein Inhibitor of Activated Signal Transducer and Activator of Transcription-y) », Molecular Endocrinology, vol. 18, no 8, , p. 1988–1999 (ISSN 0888-8809 et 1944-9917, DOI 10.1210/me.2003-0467, lire en ligne, consulté le )
- ↑ Dallenbach-Hellweg G. The Normal Histology of the Endometrium. Histopathology of the Endometrium. Berlin, Heidelberg: Springer (1981).
- ↑ Sarah L. Harden, Jieliang Zhou, Seley Gharanei et Maria Diniz-da-Costa, « Exometabolomic Analysis of Decidualizing Human Endometrial Stromal and Perivascular Cells », Frontiers in Cell and Developmental Biology, vol. 9, (ISSN 2296-634X, PMID 33585482, PMCID 7876294, DOI 10.3389/fcell.2021.626619, lire en ligne, consulté le )
- ↑ Seley Gharanei, Katherine Fishwick, Ruban Peter Durairaj et Tianrong Jin, « Vascular Adhesion Protein-1 Determines the Cellular Properties of Endometrial Pericytes », Frontiers in Cell and Developmental Biology, vol. 8, (ISSN 2296-634X, PMID 33537312, PMCID 7848099, DOI 10.3389/fcell.2020.621016, lire en ligne, consulté le )
- (en) Keisuke Murakami, Yie Hou Lee, Emma S. Lucas et Yi-Wah Chan, « Decidualization Induces a Secretome Switch in Perivascular Niche Cells of the Human Endometrium », Endocrinology, vol. 155, no 11, , p. 4542–4553 (ISSN 0013-7227 et 1945-7170, DOI 10.1210/en.2014-1370, lire en ligne, consulté le )
- (en) Haidy El-Azzamy, Andrea Balogh, Roberto Romero et Yi Xu, « Characteristic Changes in Decidual Gene Expression Signature in Spontaneous Term Parturition », Journal of Pathology and Translational Medicine, vol. 51, no 3, , p. 264–283 (ISSN 2383-7837 et 2383-7845, PMID 28226203, PMCID 5445200, DOI 10.4132/jptm.2016.12.20, lire en ligne, consulté le )
- ↑ (en) Joan C Wijaya, Ramin Khanabdali, Harry M Georgiou et Maria I Kokkinos, « Functional changes in decidual mesenchymal stem/stromal cells are associated with spontaneous onset of labour », Molecular Human Reproduction, vol. 26, no 8, , p. 636–651 (ISSN 1460-2407, DOI 10.1093/molehr/gaaa045, lire en ligne, consulté le )
- ↑ (en) Jan J. Brosens, Naoki Hayashi et John O. White, « Progesterone Receptor Regulates Decidual Prolactin Expression in Differentiating Human Endometrial Stromal Cells1 », Endocrinology, vol. 140, no 10, , p. 4809–4820 (ISSN 0013-7227 et 1945-7170, DOI 10.1210/endo.140.10.7070, lire en ligne, consulté le )
- ↑ (en) Mark Christian, Yvonne Pohnke, Rita Kempf et Birgit Gellersen, « Functional Association of PR and CCAAT/Enhancer-Binding Proteinβ Isoforms: Promoter-Dependent Cooperation between PR-B and Liver-Enriched Inhibitory Protein, or Liver-Enriched Activatory Protein and PR-A in Human Endometrial Stromal Cells », Molecular Endocrinology, vol. 16, no 1, , p. 141–154 (ISSN 0888-8809 et 1944-9917, DOI 10.1210/mend.16.1.0763, lire en ligne, consulté le )
- ↑ (en) Mark Christian, Xiaohui Zhang, Tanja Schneider-Merck et Terry G. Unterman, « Cyclic AMP-induced Forkhead Transcription Factor, FKHR, Cooperates with CCAAT/Enhancer-binding Protein β in Differentiating Human Endometrial Stromal Cells », Journal of Biological Chemistry, vol. 277, no 23, , p. 20825–20832 (DOI 10.1074/jbc.M201018200, lire en ligne, consulté le )
- ↑ (en) Marwa Al-Sabbagh, Luca Fusi, Jenny Higham et Yun Lee, « NADPH Oxidase-Derived Reactive Oxygen Species Mediate Decidualization of Human Endometrial Stromal Cells in Response to Cyclic AMP Signaling », Endocrinology, vol. 152, no 2, , p. 730–740 (ISSN 0013-7227 et 1945-7170, PMID 21159852, PMCID 3037160, DOI 10.1210/en.2010-0899, lire en ligne, consulté le )
- ↑ (en) Madhuri S. Salker, Jaya Nautiyal, Jennifer H. Steel et Zoe Webster, « Disordered IL-33/ST2 Activation in Decidualizing Stromal Cells Prolongs Uterine Receptivity in Women with Recurrent Pregnancy Loss », PLoS ONE, vol. 7, no 12, , e52252 (ISSN 1932-6203, PMID 23300625, PMCID 3531406, DOI 10.1371/journal.pone.0052252, lire en ligne, consulté le )
- ↑ (en) Pavle Vrljicak, Emma S. Lucas, Lauren Lansdowne et Raffaella Lucciola, « Analysis of chromatin accessibility in decidualizing human endometrial stromal cells », The FASEB Journal, vol. 32, no 5, , p. 2467–2477 (ISSN 0892-6638 et 1530-6860, DOI 10.1096/fj.201701098R, lire en ligne, consulté le )
- ↑ (en) Giulia Grimaldi, Mark Christian, Siobhan Quenby et Jan J Brosens, « Expression of epigenetic effectors in decidualizing human endometrial stromal cells », MHR: Basic science of reproductive medicine, vol. 18, no 9, , p. 451–458 (ISSN 1460-2407 et 1360-9947, DOI 10.1093/molehr/gas020, lire en ligne, consulté le )
- ↑ (en) Giulia Grimaldi, Mark Christian, Jennifer H. Steel et Patrick Henriet, « Down-Regulation of the Histone Methyltransferase EZH2 Contributes to the Epigenetic Programming of Decidualizing Human Endometrial Stromal Cells », Molecular Endocrinology, vol. 25, no 11, , p. 1892–1903 (ISSN 0888-8809 et 1944-9917, PMID 21903722, PMCID 3198959, DOI 10.1210/me.2011-1139, lire en ligne, consulté le )
- ↑ (en) Beatriz Leitao, Marius C. Jones, Luca Fusi et Jenny Higham, « Silencing of the JNK pathway maintains progesterone receptor activity in decidualizing human endometrial stromal cells exposed to oxidative stress signals », The FASEB Journal, vol. 24, no 5, , p. 1541–1551 (ISSN 0892-6638 et 1530-6860, PMID 20026682, PMCID 2857868, DOI 10.1096/fj.09-149153, lire en ligne, consulté le )
- ↑ (en) Jie Yu, Sarah L Berga, Wei Zou et D Grace Yook, « IL-1β Inhibits Connexin 43 and Disrupts Decidualization of Human Endometrial Stromal Cells Through ERK1/2 and p38 MAP Kinase », Endocrinology, vol. 158, no 12, , p. 4270–4285 (ISSN 0013-7227 et 1945-7170, PMID 28938400, PMCID 5711380, DOI 10.1210/en.2017-00495, lire en ligne, consulté le )
- ↑ (en) Mirna Marinić, Katelyn Mika, Sravanthi Chigurupati et Vincent J Lynch, « Evolutionary transcriptomics implicates HAND2 in the origins of implantation and regulation of gestation length », eLife, vol. 10, (ISSN 2050-084X, DOI 10.7554/eLife.61257, lire en ligne, consulté le )
- ↑ (en) Patrice Nancy, Elisa Tagliani, Chin-Siean Tay et Patrik Asp, « Chemokine Gene Silencing in Decidual Stromal Cells Limits T Cell Access to the Maternal-Fetal Interface », Science, vol. 336, no 6086, , p. 1317–1321 (ISSN 0036-8075 et 1095-9203, PMID 22679098, PMCID 3727649, DOI 10.1126/science.1220030, lire en ligne, consulté le )
- (en) Vassilis Gorgoulis, Peter D. Adams, Andrea Alimonti et Dorothy C. Bennett, « Cellular Senescence: Defining a Path Forward », Cell, vol. 179, no 4, , p. 813–827 (DOI 10.1016/j.cell.2019.10.005, lire en ligne, consulté le )
- ↑ (en) Daniel Muñoz-Espín et Manuel Serrano, « Cellular senescence: from physiology to pathology », Nature Reviews Molecular Cell Biology, vol. 15, no 7, , p. 482–496 (ISSN 1471-0072 et 1471-0080, DOI 10.1038/nrm3823, lire en ligne, consulté le )
- ↑ (en) Jan M. van Deursen, « The role of senescent cells in ageing », Nature, vol. 509, no 7501, , p. 439–446 (ISSN 0028-0836 et 1476-4687, PMID 24848057, PMCID 4214092, DOI 10.1038/nature13193, lire en ligne, consulté le )
- ↑ (en) Asako Ochiai, Keiji Kuroda, Rie Ozaki et Yuko Ikemoto, « Resveratrol inhibits decidualization by accelerating downregulation of the CRABP2-RAR pathway in differentiating human endometrial stromal cells », Cell Death & Disease, vol. 10, no 4, (ISSN 2041-4889, PMID 30894514, PMCID 6427032, DOI 10.1038/s41419-019-1511-7, lire en ligne, consulté le )
- ↑ (en) Irina Vassilieva, Vera Kosheverova, Mikhail Vitte et Rimma Kamentseva, « Paracrine senescence of human endometrial mesenchymal stem cells: a role for the insulin-like growth factor binding protein 3 », Aging, vol. 12, no 2, , p. 1987–2004 (ISSN 1945-4589, PMID 31951594, PMCID 7053595, DOI 10.18632/aging.102737, lire en ligne, consulté le )
- (en) H. Ludwig et U. M. Spornitz, « Microarchitecture of the Human Endometrium by Scanning Electron Microscopy: Menstrual Desquamation and Remodeling », Annals of the New York Academy of Sciences, vol. 622, no 1, , p. 28–46 (ISSN 0077-8923 et 1749-6632, DOI 10.1111/j.1749-6632.1991.tb37848.x, lire en ligne, consulté le )
- ↑ (en) Amma Owusu-Akyaw, Kavitha Krishnamoorthy, Laura T Goldsmith et Sara S Morelli, « The role of mesenchymal–epithelial transition in endometrial function », Human Reproduction Update, vol. 25, no 1, , p. 114–133 (ISSN 1355-4786 et 1460-2369, DOI 10.1093/humupd/dmy035, lire en ligne, consulté le )
- ↑ (en) Amanda L. Patterson, Ling Zhang, Nelson A. Arango et Jose Teixeira, « Mesenchymal-to-Epithelial Transition Contributes to Endometrial Regeneration Following Natural and Artificial Decidualization », Stem Cells and Development, vol. 22, no 6, , p. 964–974 (ISSN 1547-3287 et 1557-8534, PMID 23216285, PMCID 3585744, DOI 10.1089/scd.2012.0435, lire en ligne, consulté le )
- ↑ (en) F. Pansini, C.M. Bergamini, S. Bettocchi, Jr. et M. Malfaccini, « Sex Steroid Hormones Influence the cAMP Content in Human Endometrium during the Menstrual Cycle », Gynecologic and Obstetric Investigation, vol. 18, no 4, , p. 174–177 (ISSN 1423-002X et 0378-7346, DOI 10.1159/000299076, lire en ligne, consulté le )
- ↑ (en) Daniel J Stadtmauer et Günter P Wagner, « Single-cell analysis of prostaglandin E2-induced human decidual cell in vitro differentiation: a minimal ancestral deciduogenic signal », Biology of Reproduction, vol. 106, no 1, , p. 155–172 (ISSN 0006-3363 et 1529-7268, PMID 34591094, PMCID 8757638, DOI 10.1093/biolre/ioab183, lire en ligne, consulté le )
- ↑ B Gellersen et J Brosens, « Cyclic AMP and progesterone receptor cross-talk in human endometrium: a decidualizing affair », Journal of Endocrinology, vol. 178, no 3, , p. 357–372 (ISSN 0022-0795 et 1479-6805, DOI 10.1677/joe.0.1780357, lire en ligne, consulté le )
- ↑ (en) Yvonne Pohnke, Tanja Schneider-Merck, Jasmin Fahnenstich et Rita Kempf, « Wild-Type p53 Protein Is Up-Regulated upon Cyclic Adenosine Monophosphate-Induced Differentiation of Human Endometrial Stromal Cells », The Journal of Clinical Endocrinology & Metabolism, vol. 89, no 10, , p. 5233–5244 (ISSN 0021-972X et 1945-7197, DOI 10.1210/jc.2004-0012, lire en ligne, consulté le )
- (en) Chow‐Seng Kong, Alexandra Almansa Ordoñez, Sarah Turner et Tina Tremaine, « Embryo biosensing by uterine natural killer cells determines endometrial fate decisions at implantation », The FASEB Journal, vol. 35, no 4, (ISSN 0892-6638 et 1530-6860, DOI 10.1096/fj.202002217R, lire en ligne, consulté le )
- ↑ (en) Emma S. Lucas, Nigel P. Dyer, Keisuke Murakami et Yie Hou Lee, « Loss of Endometrial Plasticity in Recurrent Pregnancy Loss », Stem Cells, vol. 34, no 2, , p. 346–356 (ISSN 1066-5099 et 1549-4918, DOI 10.1002/stem.2222, lire en ligne, consulté le )
- ↑ (en) Qichen Cao, Hua Chen, Zhili Deng et Jingwen Yue, « Genetic deletion of Cxcl14 in mice alters uterine NK cells », Biochemical and Biophysical Research Communications, vol. 435, no 4, , p. 664–670 (DOI 10.1016/j.bbrc.2013.04.106, lire en ligne, consulté le )
- ↑ (en) N. M. Mokhtar, C.-w. Cheng, E. Cook et H. Bielby, « Progestin regulates chemokine (C-X-C motif) ligand 14 transcript level in human endometrium », Molecular Human Reproduction, vol. 16, no 3, , p. 170–177 (ISSN 1360-9947 et 1460-2407, DOI 10.1093/molehr/gap100, lire en ligne, consulté le )
- ↑ (en) Rina Iwase, Naoto Naruse, Miho Nakagawa et Risa Saito, « Identification of Functional Domains of CXCL14 Involved in High-Affinity Binding and Intracellular Transport of CpG DNA », The Journal of Immunology, vol. 207, no 2, , p. 459–469 (ISSN 0022-1767 et 1550-6606, DOI 10.4049/jimmunol.2100030, lire en ligne, consulté le )
- (en) Benedikt Strunz, Jonna Bister, Hanna Jönsson et Iva Filipovic, « Continuous human uterine NK cell differentiation in response to endometrial regeneration and pregnancy », Science Immunology, vol. 6, no 56, (ISSN 2470-9468, DOI 10.1126/sciimmunol.abb7800, lire en ligne, consulté le )
- ↑ (en) Ali A. Ashkar, Gordon P. Black, Qingxia Wei et Hong He, « Assessment of Requirements for IL-15 and IFN Regulatory Factors in Uterine NK Cell Differentiation and Function During Pregnancy », The Journal of Immunology, vol. 171, no 6, , p. 2937–2944 (ISSN 0022-1767 et 1550-6606, DOI 10.4049/jimmunol.171.6.2937, lire en ligne, consulté le )
- ↑ Dipanjan Chowdhury et Judy Lieberman, « Death by a Thousand Cuts: Granzyme Pathways of Programmed Cell Death », Annual Review of Immunology, vol. 26, no Volume 26, 2008, , p. 389–420 (ISSN 0732-0582 et 1545-3278, PMID 18304003, PMCID 2790083, DOI 10.1146/annurev.immunol.26.021607.090404, lire en ligne, consulté le )
- ↑ (en) Adi Sagiv, Dominick G. A. Burton, Zhana Moshayev et Ezra Vadai, « NKG2D ligands mediate immunosurveillance of senescent cells », Aging, vol. 8, no 2, , p. 328–344 (ISSN 1945-4589, PMID 26878797, PMCID 4789586, DOI 10.18632/aging.100897, lire en ligne, consulté le )
- ↑ (en) Lewis L. Lanier, « NKG2D Receptor and Its Ligands in Host Defense », Cancer Immunology Research, vol. 3, no 6, , p. 575–582 (ISSN 2326-6066 et 2326-6074, DOI 10.1158/2326-6066.CIR-15-0098, lire en ligne, consulté le )
- ↑ Alessandra Zingoni, Rosa Molfetta, Cinzia Fionda et Alessandra Soriani, « NKG2D and Its Ligands: “One for All, All for One” », Frontiers in Immunology, vol. 9, (ISSN 1664-3224, PMID 29662484, PMCID 5890157, DOI 10.3389/fimmu.2018.00476, lire en ligne, consulté le )
- ↑ (en) Philippe Boutet, Sonia Agüera-González, Susan Atkinson et Caroline J Pennington, « Cutting Edge: The Metalloproteinase ADAM17/TNF-α-Converting Enzyme Regulates Proteolytic Shedding of the MHC Class I-Related Chain B Protein », The Journal of Immunology, vol. 182, no 1, , p. 49–53 (ISSN 1550-6606 et 0022-1767, DOI 10.4049/jimmunol.182.1.49, lire en ligne, consulté le )
- ↑ (en) Inja Waldhauer, Dennis Goehlsdorf, Friederike Gieseke et Toni Weinschenk, « Tumor-Associated MICA Is Shed by ADAM Proteases », Cancer Research, vol. 68, no 15, , p. 6368–6376 (ISSN 0008-5472 et 1538-7445, DOI 10.1158/0008-5472.CAN-07-6768, lire en ligne, consulté le )
- ↑ Dong Fan et Zamaneh Kassiri, « Biology of Tissue Inhibitor of Metalloproteinase 3 (TIMP3), and Its Therapeutic Implications in Cardiovascular Pathology », Frontiers in Physiology, vol. 11, (ISSN 1664-042X, PMID 32612540, PMCID 7308558, DOI 10.3389/fphys.2020.00661, lire en ligne, consulté le )
- (en) Reshef Tal, Shafiq Shaikh, Pallavi Pallavi et Aya Tal, « Adult bone marrow progenitors become decidual cells and contribute to embryo implantation and pregnancy », PLOS Biology, vol. 17, no 9, , e3000421 (ISSN 1545-7885, PMID 31513564, PMCID 6742226, DOI 10.1371/journal.pbio.3000421, lire en ligne, consulté le )
- ↑ (en) Errol R. Norwitz, Danny J. Schust et Susan J. Fisher, « Implantation and the Survival of Early Pregnancy », New England Journal of Medicine, vol. 345, no 19, , p. 1400–1408 (ISSN 0028-4793 et 1533-4406, DOI 10.1056/NEJMra000763, lire en ligne, consulté le )
- ↑ (en) B C Paria, Y M Huet-Hudson et S K Dey, « Blastocyst's state of activity determines the "window" of implantation in the receptive mouse uterus. », Proceedings of the National Academy of Sciences, vol. 90, no 21, , p. 10159–10162 (ISSN 0027-8424 et 1091-6490, PMID 8234270, PMCID 47733, DOI 10.1073/pnas.90.21.10159, lire en ligne, consulté le )
- ↑ (en) Alexandre Psychoyos, « Uterine Receptivity for Nidationa », Annals of the New York Academy of Sciences, vol. 476, no 1, , p. 36–42 (ISSN 0077-8923 et 1749-6632, DOI 10.1111/j.1749-6632.1986.tb20920.x, lire en ligne, consulté le )
- ↑ (en) Wen-ge Ma, Haengseok Song, Sanjoy K. Das et Bibhash C. Paria, « Estrogen is a critical determinant that specifies the duration of the window of uterine receptivity for implantation », Proceedings of the National Academy of Sciences, vol. 100, no 5, , p. 2963–2968 (ISSN 0027-8424 et 1091-6490, PMID 12601161, PMCID 151449, DOI 10.1073/pnas.0530162100, lire en ligne, consulté le )
- ↑ (en) Marilyn B. Renfree et Jane C. Fenelon, « The enigma of embryonic diapause », Development, vol. 144, no 18, , p. 3199–3210 (ISSN 1477-9129 et 0950-1991, DOI 10.1242/dev.148213, lire en ligne, consulté le )
- ↑ (en) Margaret R. Starostik, Olukayode A. Sosina et Rajiv C. McCoy, « Single-cell analysis of human embryos reveals diverse patterns of aneuploidy and mosaicism », Genome Research, vol. 30, no 6, , p. 814–825 (ISSN 1088-9051 et 1549-5469, PMID 32641298, PMCID 7370883, DOI 10.1101/gr.262774.120, lire en ligne, consulté le )
- (en) Anthony M. Carter, Allen C. Enders et Robert Pijnenborg, « The role of invasive trophoblast in implantation and placentation of primates », Philosophical Transactions of the Royal Society B: Biological Sciences, vol. 370, no 1663, , p. 20140070 (ISSN 0962-8436 et 1471-2970, PMID 25602074, PMCID 4305171, DOI 10.1098/rstb.2014.0070, lire en ligne, consulté le )
- ↑ (en) Madhuri S Salker, Mark Christian, Jennifer H Steel et Jaya Nautiyal, « Deregulation of the serum- and glucocorticoid-inducible kinase SGK1 in the endometrium causes reproductive failure », Nature Medicine, vol. 17, no 11, , p. 1509–1513 (ISSN 1078-8956 et 1546-170X, DOI 10.1038/nm.2498, lire en ligne, consulté le )
- ↑ (en) Madhuri S. Salker, Jennifer H. Steel, Zohreh Hosseinzadeh et Jaya Nautiyal, « Activation of SGK1 in Endometrial Epithelial Cells in Response to PI3K/AKT Inhibition Impairs Embryo Implantation », Cellular Physiology and Biochemistry, vol. 39, no 5, , p. 2077–2087 (ISSN 1015-8987 et 1421-9778, DOI 10.1159/000447903, lire en ligne, consulté le )
- ↑ (en) N. Salleh, D.L. Baines, R.J. Naftalin et S.R. Milligan, « The Hormonal Control of Uterine Luminal Fluid Secretion and Absorption », Journal of Membrane Biology, vol. 206, no 1, , p. 17–28 (ISSN 0022-2631 et 1432-1424, DOI 10.1007/s00232-005-0770-7, lire en ligne, consulté le )
- ↑ (en) A Aberkane, W Essahib, C Spits et C De Paepe, « Expression of adhesion and extracellular matrix genes in human blastocysts upon attachment in a 2D co-culture system », MHR: Basic science of reproductive medicine, (ISSN 1460-2407, DOI 10.1093/molehr/gay024, lire en ligne, consulté le )
- ↑ (en) Robbert P Berkhout, Remco Keijser, Sjoerd Repping et Cornelis B Lambalk, « High-quality human preimplantation embryos stimulate endometrial stromal cell migration via secretion of microRNA hsa-miR-320a », Human Reproduction, vol. 35, no 8, , p. 1797–1807 (ISSN 0268-1161 et 1460-2350, PMID 32644109, PMCID 7398623, DOI 10.1093/humrep/deaa149, lire en ligne, consulté le )
- (en) Charlotte H. E. Weimar, Annemieke Kavelaars, Jan J. Brosens et Birgit Gellersen, « Endometrial Stromal Cells of Women with Recurrent Miscarriage Fail to Discriminate between High- and Low-Quality Human Embryos », PLoS ONE, vol. 7, no 7, , e41424 (ISSN 1932-6203, PMID 22848492, PMCID 3405140, DOI 10.1371/journal.pone.0041424, lire en ligne, consulté le )
- ↑ (en) Robbert P. Berkhout, Cornelis B. Lambalk, Sjoerd Repping et Geert Hamer, « Premature expression of the decidualization marker prolactin is associated with repeated implantation failure », Gynecological Endocrinology, vol. 36, no 4, , p. 360–364 (ISSN 0951-3590 et 1473-0766, DOI 10.1080/09513590.2019.1650344, lire en ligne, consulté le )
- ↑ (en) R. P. Berkhout, C. B. Lambalk, J. Huirne et V. Mijatovic, « High-quality human preimplantation embryos actively influence endometrial stromal cell migration », Journal of Assisted Reproduction and Genetics, vol. 35, no 4, , p. 659–667 (ISSN 1058-0468 et 1573-7330, PMID 29282583, PMCID 5949101, DOI 10.1007/s10815-017-1107-z, lire en ligne, consulté le )
- ↑ (en) Charlotte H.E. Weimar, Nick S. Macklon, Emiel D. Post Uiterweer et Jan J. Brosens, « The motile and invasive capacity of human endometrial stromal cells: implications for normal and impaired reproductive function », Human Reproduction Update, vol. 19, no 5, , p. 542–557 (ISSN 1460-2369 et 1355-4786, DOI 10.1093/humupd/dmt025, lire en ligne, consulté le )
- ↑ (en) Nick S. Macklon et Jan J. Brosens, « The Human Endometrium as a Sensor of Embryo Quality1 », Biology of Reproduction, vol. 91, no 4, (ISSN 0006-3363 et 1529-7268, DOI 10.1095/biolreprod.114.122846, lire en ligne, consulté le )
- ↑ (en) Jan J. Brosens, Madhuri S. Salker, Gijs Teklenburg et Jaya Nautiyal, « Uterine Selection of Human Embryos at Implantation », Scientific Reports, vol. 4, no 1, (ISSN 2045-2322, PMID 24503642, PMCID 3915549, DOI 10.1038/srep03894, lire en ligne, consulté le )
- ↑ (en) Lin Foo, Sarah Johnson, Lorrae Marriott et Tom Bourne, « Peri‐implantation urinary hormone monitoring distinguishes between types of first‐trimester spontaneous pregnancy loss », Paediatric and Perinatal Epidemiology, vol. 34, no 5, , p. 495–503 (ISSN 0269-5022 et 1365-3016, PMID 32056241, PMCID 7496486, DOI 10.1111/ppe.12613, lire en ligne, consulté le )
- ↑ (en) Xiaobin Wang, Changzhong Chen, Lihua Wang et Dafang Chen, « Conception, early pregnancy loss, and time to clinical pregnancy: a population-based prospective study », Fertility and Sterility, vol. 79, no 3, , p. 577–584 (DOI 10.1016/S0015-0282(02)04694-0, lire en ligne, consulté le )
- ↑ (en) Allen J. Wilcox, Clarice R. Weinberg, John F. O'Connor et Donna D. Baird, « Incidence of Early Loss of Pregnancy », New England Journal of Medicine, vol. 319, no 4, , p. 189–194 (ISSN 0028-4793 et 1533-4406, DOI 10.1056/NEJM198807283190401, lire en ligne, consulté le )
- ↑ (en) Michael J. Zinaman, Eric D. Clegg, Charles C. Brown et John O’Connor, « Estimates of human fertility and pregnancy loss », Fertility and Sterility, vol. 65, no 3, , p. 503–509 (DOI 10.1016/S0015-0282(16)58144-8, lire en ligne, consulté le )
- ↑ (en) Lorrae Marriott, Michael Zinaman, Keith R Abrams et Michael J Crowther, « Analysis of urinary human chorionic gonadotrophin concentrations in normal and failing pregnancies using longitudinal, Cox proportional hazards and two-stage modelling », Annals of Clinical Biochemistry: International Journal of Laboratory Medicine, vol. 54, no 5, , p. 548–557 (ISSN 0004-5632 et 1758-1001, DOI 10.1177/0004563216671339, lire en ligne, consulté le )
- ↑ (en) W. F. A. Marei, M. Salavati et A. A. Fouladi-Nashta, « Critical role of hyaluronidase-2 during preimplantation embryo development », Molecular Human Reproduction, vol. 19, no 9, , p. 590–599 (ISSN 1360-9947 et 1460-2407, DOI 10.1093/molehr/gat032, lire en ligne, consulté le )
- (en) Ali A Fouladi-Nashta, Kabir A Raheem, Waleed F Marei et Fataneh Ghafari, « Regulation and roles of the hyaluronan system in mammalian reproduction », Reproduction, vol. 153, no 2, , R43–R58 (ISSN 1470-1626 et 1741-7899, DOI 10.1530/REP-16-0240, lire en ligne, consulté le )
- ↑ (en) Nicole Kane, Rodney Kelly, Philippa T. K. Saunders et Hilary O. D. Critchley, « Proliferation of Uterine Natural Killer Cells Is Induced by Human Chorionic Gonadotropin and Mediated via the Mannose Receptor », Endocrinology, vol. 150, no 6, , p. 2882–2888 (ISSN 0013-7227 et 1945-7170, PMID 19196802, PMCID 2709965, DOI 10.1210/en.2008-1309, lire en ligne, consulté le )
- (en) Lois A. Salamonsen, Jennifer C. Hutchison et Caroline E. Gargett, « Cyclical endometrial repair and regeneration », Development, vol. 148, no 17, (ISSN 0950-1991 et 1477-9129, DOI 10.1242/dev.199577, lire en ligne, consulté le )
- ↑ (en) Anthony Lagnado, Jack Leslie, Marie‐Helene Ruchaud‐Sparagano et Stella Victorelli, « Neutrophils induce paracrine telomere dysfunction and senescence in ROS‐dependent manner », The EMBO Journal, vol. 40, no 9, (ISSN 0261-4189 et 1460-2075, PMID 33764576, PMCID 8090854, DOI 10.15252/embj.2020106048, lire en ligne, consulté le )
- (en) R. Garry, R. Hart, K.A. Karthigasu et C. Burke, « A re-appraisal of the morphological changes within the endometrium during menstruation: a hysteroscopic, histological and scanning electron microscopic study », Human Reproduction, vol. 24, no 6, , p. 1393–1401 (ISSN 0268-1161 et 1460-2350, DOI 10.1093/humrep/dep036, lire en ligne, consulté le )
- (en) R Garry, R Hart, Ka Karthigasu et C Burke, « Structural changes in endometrial basal glands during menstruation », BJOG: An International Journal of Obstetrics & Gynaecology, vol. 117, no 10, , p. 1175–1185 (ISSN 1470-0328 et 1471-0528, DOI 10.1111/j.1471-0528.2010.02630.x, lire en ligne, consulté le )
- ↑ (en) Birgit Ritschka, Mekayla Storer, Alba Mas et Florian Heinzmann, « The senescence-associated secretory phenotype induces cellular plasticity and tissue regeneration », Genes & Development, vol. 31, no 2, , p. 172–183 (ISSN 0890-9369 et 1549-5477, PMID 28143833, PMCID 5322731, DOI 10.1101/gad.290635.116, lire en ligne, consulté le )
- (en) Siobhan Quenby, Ioannis D Gallos, Rima K Dhillon-Smith et Marcelina Podesek, « Miscarriage matters: the epidemiological, physical, psychological, and economic costs of early pregnancy loss », The Lancet, vol. 397, no 10285, , p. 1658–1667 (DOI 10.1016/S0140-6736(21)00682-6, lire en ligne, consulté le )
- (en) Astrid M Kolte, David Westergaard, Øjvind Lidegaard et Søren Brunak, « Chance of live birth: a nationwide, registry-based cohort study », Human Reproduction, vol. 36, no 4, , p. 1065–1073 (ISSN 0268-1161 et 1460-2350, DOI 10.1093/humrep/deaa326, lire en ligne, consulté le )
- (en) Maria C Magnus, Allen J Wilcox, Nils-Halvdan Morken et Clarice R Weinberg, « Role of maternal age and pregnancy history in risk of miscarriage: prospective register based study », BMJ, , l869 (ISSN 0959-8138 et 1756-1833, DOI 10.1136/bmj.l869, lire en ligne, consulté le )
- ↑ (en) Kathy Hardy, Philip J. Hardy, Patricia A. Jacobs et Kevin Lewallen, « Temporal changes in chromosome abnormalities in human spontaneous abortions: Results of 40 years of analysis », American Journal of Medical Genetics Part A, vol. 170, no 10, , p. 2671–2680 (ISSN 1552-4825 et 1552-4833, DOI 10.1002/ajmg.a.37795, lire en ligne, consulté le )
- (en) Ulla Breth Knudsen, Villy Hansen, Svend Juul et Niels Jørgen Secher, « Prognosis of a new pregnancy following previous spontaneous abortions », European Journal of Obstetrics & Gynecology and Reproductive Biology, vol. 39, no 1, , p. 31–36 (DOI 10.1016/0028-2243(91)90138-B, lire en ligne, consulté le )
- A.-M. N. Andersen, « Maternal age and fetal loss: population based register linkage study », BMJ, vol. 320, no 7251, , p. 1708–1712 (PMID 10864550, PMCID 27416, DOI 10.1136/bmj.320.7251.1708, lire en ligne, consulté le )
- ↑ (en) Harvey A. Risch, Noel S. Weiss, E. Aileen Clarke et Anthony B. Miller, « RISK FACTORS FOR SPONTANEOUS ABORTION AND ITS RECURRENCE », American Journal of Epidemiology, vol. 128, no 2, , p. 420–430 (ISSN 1476-6256 et 0002-9262, DOI 10.1093/oxfordjournals.aje.a114982, lire en ligne, consulté le )
- (en) Evdokia Dimitriadis, Ellen Menkhorst, Shigeru Saito et William H. Kutteh, « Recurrent pregnancy loss », Nature Reviews Disease Primers, vol. 6, no 1, (ISSN 2056-676X, DOI 10.1038/s41572-020-00228-z, lire en ligne, consulté le )
- (en) Arri Coomarasamy, Adam J. Devall, Jan J. Brosens et Siobhan Quenby, « Micronized vaginal progesterone to prevent miscarriage: a critical evaluation of randomized evidence », American Journal of Obstetrics and Gynecology, vol. 223, no 2, , p. 167–176 (PMID 32008730, PMCID 7408486, DOI 10.1016/j.ajog.2019.12.006, lire en ligne, consulté le )
- ↑ (en) Arri Coomarasamy, Rima K Dhillon-Smith, Argyro Papadopoulou et Maya Al-Memar, « Recurrent miscarriage: evidence to accelerate action », The Lancet, vol. 397, no 10285, , p. 1675–1682 (DOI 10.1016/S0140-6736(21)00681-4, lire en ligne, consulté le )
- ↑ (en) Adam J Devall, Ioannis D Gallos, Yakoub Khalaf et Ben WJ Mol, « Re: Effect of progestogen for women with threatened miscarriage: a systematic review and meta‐analysis », BJOG: An International Journal of Obstetrics & Gynaecology, vol. 127, no 10, , p. 1303–1304 (ISSN 1470-0328 et 1471-0528, DOI 10.1111/1471-0528.16358, lire en ligne, consulté le )
- ↑ (en) Christiane Kling, Jürgen Hedderich et Dieter Kabelitz, « Fertility after recurrent miscarriages: results of an observational cohort study », Archives of Gynecology and Obstetrics, vol. 297, no 1, , p. 205–219 (ISSN 0932-0067 et 1432-0711, PMID 29038842, PMCID 5762794, DOI 10.1007/s00404-017-4532-4, lire en ligne, consulté le )
- ↑ (en) Keiko Morita, Yosuke Ono, Toshiyuki Takeshita et Toshitaka Sugi, « Risk Factors and Outcomes of Recurrent Pregnancy Loss in Japan », Journal of Obstetrics and Gynaecology Research, vol. 45, no 10, , p. 1997–2006 (ISSN 1341-8076 et 1447-0756, DOI 10.1111/jog.14083, lire en ligne, consulté le )
- ↑ (en) Lauren J. Ewington, Shreeya Tewary et Jan J. Brosens, « New insights into the mechanisms underlying recurrent pregnancy loss », Journal of Obstetrics and Gynaecology Research, vol. 45, no 2, , p. 258–265 (ISSN 1341-8076 et 1447-0756, DOI 10.1111/jog.13837, lire en ligne, consulté le )
- ↑ (en) Marcelo B. Cavalcante, Manoel Sarno, Alberto B. Peixoto et Edward Araujo Júnior, « Obesity and recurrent miscarriage: A systematic review and meta‐analysis », Journal of Obstetrics and Gynaecology Research, vol. 45, no 1, , p. 30–38 (ISSN 1341-8076 et 1447-0756, DOI 10.1111/jog.13799, lire en ligne, consulté le )
- ↑ (en) Emma S. Lucas, Nigel P. Dyer, Keisuke Murakami et Yie Hou Lee, « Loss of Endometrial Plasticity in Recurrent Pregnancy Loss », Stem Cells, vol. 34, no 2, , p. 346–356 (ISSN 1066-5099 et 1549-4918, DOI 10.1002/stem.2222, lire en ligne, consulté le )
- ↑ (en) Birgit Ritschka, Mekayla Storer, Alba Mas et Florian Heinzmann, « The senescence-associated secretory phenotype induces cellular plasticity and tissue regeneration », Genes & Development, vol. 31, no 2, , p. 172–183 (ISSN 0890-9369 et 1549-5477, PMID 28143833, PMCID 5322731, DOI 10.1101/gad.290635.116, lire en ligne, consulté le )
- (en) A. W. Tang, Z. Alfirevic et S. Quenby, « Natural killer cells and pregnancy outcomes in women with recurrent miscarriage and infertility: a systematic review », Human Reproduction, vol. 26, no 8, , p. 1971–1980 (ISSN 0268-1161 et 1460-2350, DOI 10.1093/humrep/der164, lire en ligne, consulté le )
- ↑ (en) Ashley Moffett, Olympe Chazara et Francesco Colucci, « Maternal allo-recognition of the fetus », Fertility and Sterility, vol. 107, no 6, , p. 1269–1272 (DOI 10.1016/j.fertnstert.2017.05.001, lire en ligne, consulté le )
- ↑ (en) Atsushi Fukui, Ayano Funamizu, Rie Fukuhara et Hiroaki Shibahara, « Expression of natural cytotoxicity receptors and cytokine production on endometrial natural killer cells in women with recurrent pregnancy loss or implantation failure, and the expression of natural cytotoxicity receptors on peripheral blood natural killer cells in pregnant women with a history of recurrent pregnancy loss », Journal of Obstetrics and Gynaecology Research, vol. 43, no 11, , p. 1678–1686 (ISSN 1341-8076 et 1447-0756, DOI 10.1111/jog.13448, lire en ligne, consulté le )
- ↑ (en) S.E. Hiby, L. Regan, W. Lo et L. Farrell, « Association of maternal killer-cell immunoglobulin-like receptors and parental HLA-C genotypes with recurrent miscarriage », Human Reproduction, vol. 23, no 4, , p. 972–976 (ISSN 0268-1161 et 1460-2350, DOI 10.1093/humrep/den011, lire en ligne, consulté le )
- ↑ (en) Kinue Katano, Sadao Suzuki, Yasuhiko Ozaki et Nobuhiro Suzumori, « Peripheral natural killer cell activity as a predictor of recurrent pregnancy loss: a large cohort study », Fertility and Sterility, vol. 100, no 6, , p. 1629–1634 (DOI 10.1016/j.fertnstert.2013.07.1996, lire en ligne, consulté le )
- ↑ (en) Keisuke Murakami, Harish Bhandari, Emma S. Lucas et Satoru Takeda, « Deficiency in Clonogenic Endometrial Mesenchymal Stem Cells in Obese Women with Reproductive Failure – a Pilot Study », PLoS ONE, vol. 8, no 12, , e82582 (ISSN 1932-6203, PMID 24340046, PMCID 3858319, DOI 10.1371/journal.pone.0082582, lire en ligne, consulté le )
- ↑ (en) Sofie Perdu, Barbara Castellana, Yoona Kim et Kathy Chan, « Maternal obesity drives functional alterations in uterine NK cells », JCI Insight, vol. 1, no 11, (ISSN 2379-3708, PMID 27699222, PMCID 5033901, DOI 10.1172/jci.insight.85560, lire en ligne, consulté le )
- ↑ (en) Hm Bhandari, Bk Tan et S Quenby, « Superfertility is more prevalent in obese women with recurrent early pregnancy miscarriage », BJOG: An International Journal of Obstetrics & Gynaecology, vol. 123, no 2, , p. 217–222 (ISSN 1470-0328 et 1471-0528, DOI 10.1111/1471-0528.13806, lire en ligne, consulté le )
- ↑ (en) Shreeya Tewary, Emma S. Lucas, Risa Fujihara et Peter K. Kimani, « Impact of sitagliptin on endometrial mesenchymal stem-like progenitor cells: A randomised, double-blind placebo-controlled feasibility trial », EBioMedicine, vol. 51, , p. 102597 (PMID 31928963, PMCID 7000352, DOI 10.1016/j.ebiom.2019.102597, lire en ligne, consulté le )
- ↑ (en) Lili Du, Wenbo Deng, Shanshan Zeng et Pei Xu, « Single‐cell transcriptome analysis reveals defective decidua stromal niche attributes to recurrent spontaneous abortion », Cell Proliferation, vol. 54, no 11, (ISSN 0960-7722 et 1365-2184, PMID 34546587, PMCID 8560595, DOI 10.1111/cpr.13125, lire en ligne, consulté le )
Bibliographie
 : document utilisé comme source pour la rédaction de cet article.
- Muter J, Kong C-S and Brosens JJ (2021) The Role of Decidual Subpopulations in Implantation, Menstruation and Miscarriage. Front. Reprod. Health 3:804921. https://doi.org/10.3389/frph.2021.804921
 Portail de la médecine
 Portail de la biologie