Cellule dendritique folliculaire

Recrutement : Les cellules dendritiques folliculaires sécrètent la chimiokine CXCL13, qui attire les lymphocytes B. Les lymphocytes B du centre germinatif expriment le récepteur de chimiokine CXCR5, qui se lie à CXCL13, ce qui les attire vers le CG.
Survie : Les cellules dendritiques folliculaires produisent le facteur d’activation des lymphocytes B [BAFF], impliqué dans la régulation de la survie des lymphocytes B du CG.
Présentation des complexes immuns : Via leurs récepteurs CR1, les cellules dendritiques folliculaires présentent l’antigène natif aux lymphocytes B du CG. Les lymphocytes B spécifiques de l’antigène, le reconnaissant via leur récepteur , l’endocytent et le traitent en peptides, qu’ils présentent ensuite aux lymphocytes T auxiliaires sous forme de complexes peptide–CMH II. Les lymphocytes T auxiliaires fournissent alors aux lymphocytes B des signaux de survie. On suppose qu’après chaque cycle d’hypermutation somatique, les lymphocytes B dotés de récepteur de haute affinité sont capables d’accéder à l’antigène présenté par les cellules dendritiques folliculaires et ainsi d’interagir avec les lymphocytes T auxiliaires. Cela conduit à leur sélection positive, tandis que les lymphocytes B portant des récepteurs de plus faible affinité, incapables de rivaliser pour la liaison à des quantités limitées d’antigène, entrent en apoptose.
Élimination : Le grand nombre de lymphocytes B qui ne parviennent pas à lier l’antigène présenté par les cellules dendritiques folliculaires et ne reçoivent pas l’aide des lymphocytes T auxiliaires meurent par apoptose. Pour prévenir l’auto-immunité, ces cellules doivent être éliminées efficacement. Les cellules dendritiques folliculaires sécrètent la protéine de liaison aux cellules apoptotiques Mfge8. Les cellules apoptotiques opsonisées par Mfge8 sont ensuite reconnues et éliminées par les macrophages à corps tingible.
Les cellules dendritiques folliculaires sont des cellules stromales résidant dans les follicules primaires ainsi que dans les centres germinatifs des organes lymphoïdes secondaires et tertiaires. Leur fonction principale est la présentation d’antigènes natifs, sous forme de complexes immuns, aux lymphocytes B, stimulant ainsi leur maturation d’affinité au cours de la réaction du centre germinatif. Les cellules dendritiques folliculaires possèdent la capacité unique de lier et de retenir l’antigène natif dans les follicules ganglionnaires pendant de longues périodes. Par conséquent, les cellules dendritiques folliculaires façonnent tous les antigènes reconnus par les lymphocytes B dans les organes lymphoïdes secondaires et les organes lymphoïdes tertiaires. Les cellules dendritiques folliculaires sont des cellules d’origine stromale indispensables au développement et au maintien des organes lymphoïdes secondaires et tertiaires. Elles sont situées dans la région centrale des follicules primaires et dans la zone claire des centres germinatifs.
Historique
Dans les années 60 , le dépôt d’antigène dans les organes lymphoïdes secondaires étaient étudiés en utilisant des antigènes microbiens marqués radioactivement. Leur caractéristique la plus marquante est leur capacité à capturer et à retenir l’antigène natif. Cela a été observé pour la première fois en 1965, lorsque Mitchell et Abbott ont analysé, à l’aide d’autoradiographies électroniques haute résolution, la localisation de flagelles de Salmonella Adelaide marqués à l’iode-125 dans les ganglions lymphatiques drainants de souris [1].
L'apparition de la détection immunofluorescente des antigènes permit de découvrir que certaines cellules ne phagocytaient l’antigène à la différences des cellules phagocytaires. L'antigène restait de ces cellules dont l’identité était à l’époque obscure. Miller et Nossal décrivirent que, dans le follicule ganglionnaire, l’antigène fixé en surface cellulaire était piégé sur de fins prolongements cellulaires, qu’ils croyaient alors appartenir à une sous-population de cellules phagocytaires [2],[3]. Toutefois, des études ultérieures en microscopie électronique clarifièrent que l’antigène était plutôt associé aux prolongements dendritiques de cellules réticulaires non phagocytaires et que ces cellules formaient de grandes structures en forme de réseau [4],[5],[6].
Alors que les études suivantes analysaient la distribution précise de l’antigène dans les ganglions lymphatiques et les centres germinatifs, la nature exacte de ces cellules réticulaires retenant l’antigène resta floue durant plusieurs années. Différents laboratoires utilisèrent divers noms pour les désigner : macrophages dendritiques, cellules réticulaires dendritiques, etc.[5],[7]. Cependant, la caractéristique commune reconnue par toutes ces études était la capacité extraordinaire de ces cellules à retenir l’antigène à leur surface [8]. Ainsi, elles se distinguaient clairement des cellules phagocytaires classiques. Une étude anatomique et fonctionnelle détaillée de ces cellules parut. Ils introduisirent le nom cellule dendritique folliculaire en référence à leurs longs prolongements cytoplasmiques, et non à une parenté avec les cellules dendritiques classiques [9]. Les auteurs reconnurent que le nom pourrait ne pas être idéal et suggérèrent qu’il devrait peut-être être révisé une fois que ces cellules seraient mieux comprises [9].
Cependant, même lorsque l’on constata que les cellules dendritiques folliculaires ne présentaient pas d’expression du complexe majeur d'histocompatibilité de type II – molécule fortement exprimée par les cellules dendritiques hématopoïétiques – le nom persista [10], entraînant une confusion durable entre cellules dendritiques folliculaires et les cellules dendritiques hématopoïétiques.
À l’aide de traceurs électron-denses, Chen et al. montrèrent que les cellules dendritiques folliculaires, contrairement aux macrophages, n’endocytent pas activement [8],[9]. Cette vision a récemment été révisée par une étude montrant que les cellules dendritiques folliculaires endocytent les complexes immuns qu’elles acquièrent auprès de lymphocytes B non cognates. Contrairement aux macrophages, les complexes immuns endocytés par les cellules dendritiques folliculaires conservent leur forme native et recyclent vers la surface cellulaire [11], une propriété essentielle pour l’exposition antigénique à long terme. La microscopie électronique révéla également des structures cellulaires uniques : noyaux volumineux et irréguliers, peu d’hétérochromatine, peu d’organites. Une caractéristique frappante était que les cellules dendritiques folliculaires avaient un petit corps cellulaire mais un cytoplasme s’étendant en de nombreux prolongements filiformes, formant un réseau étendu ressemblant à un « capuchon » couvrant le follicule secondaire [8],[9].
Origine des cellules dendritiques folliculaires
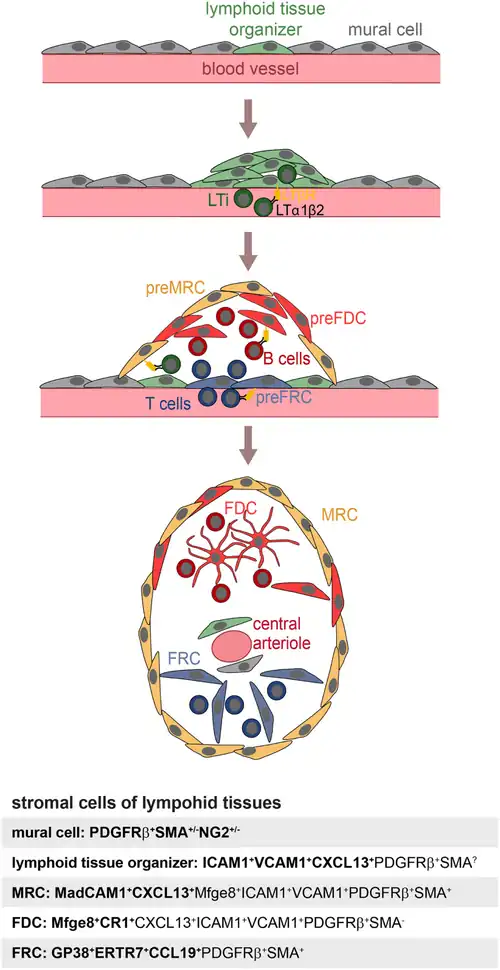
Les cellules murales et les cellules organisatrices du tissu lymphoïde bordent les vaisseaux sanguins (panneau supérieur) aux endroits où se développeront les futurs tissus lymphoïdes. Les cellules inductrices du tissu lymphoïde qui arrivent expriment la forme membranaire de LTα1β2 et déclenchent l’expansion des cellules organisatrices du tissu lymphoïde ainsi que l’augmentation de l’expression de la chimiokine CXCL13 (deuxième panneau).
Le recrutement supplémentaire de lymphocytes T et B exprimant LTα1β2 conduit à l’induction des précurseurs des cellules réticulaires marginales, des cellules dendritiques folliculaires et des cellules réticulaires fibroblastiques , tous probablement dérivés des cellules organisatrices du tissu lymphoïde (troisième panneau).
L’expression partagée de marqueurs entre les cellules réticulaires marginales et les cellules réticulaires fibroblastiques suggère une relation de lignée étroite, renforcée par l’apparition de cellules dendritiques folliculaires matures à proximité des cellules réticulaires marginales. L’afflux de lymphocytes T et B entraîne en outre une ségrégation zonale et une différenciation des vaisseaux sanguins en sinus marginal et artériole centrale, comme illustré dans le cas de la rate (panneau inférieur).
Dés la découverte des cellules dendritiques folliculaires il y a un peu plus d’un demi-siècle, des expériences initiales, principalement basées sur des chimères de moelle osseuse , indiquaient que les cellules dendritiques folliculaires sont de nature stromale, radio-résistantes et probablement sessiles [12],[13].
Alors qu’il fut rapidement reconnu que les cellules dendritiques folliculaires constituent un élément central des follicules B dans la rate et les ganglions lymphatiques, leur apparition ne se limite pas aux organes lymphoïdes secondaires. Les cellules dendritiques folliculaires contribuent également à des structures lymphoïdes non encapsulées, telles que les follicules lymphoïdes isolés de l’intestin [14]. Les cellules dendritiques folliculaires sont fréquemment observées lors de certaines inflammations chroniques dans des tissus non lymphoïdes. À la suite d’une inflammation persistante lors d’affections auto-immunes ou d’infections chroniques, ces tissus peuvent être remodelés en organes lymphoïdes tertiaires [15],[16],[17], contenant des cellules dendritiques folliculaires ainsi que des zones à lymphocytes T et à lymphocytes B séparées micro-anatomiquement. L’idée que les cellules dendritiques folliculaires puissent être générées partout dans le corps suggère que leurs précurseurs disposent soit d’une motilité importante, soit qu’ils dérivent d’un ancêtre non migratoire.
Des expériences de chimères de moelle osseuse, où les cellules dendritiques folliculaires de la rate et des ganglions lymphatiques provenaient des cellules de l’hôte, ont renforcé cette seconde hypothèse [12],[13]. L’hypothèse selon laquelle les cellules dendritiques folliculaires pourraient dériver d’un précurseur local a été davantage confortée par la découverte que les cellules dendritiques folliculaires partagent des marqueurs avec d’autres cellules stromales des organes lymphoïdes secondaires et organes lymphoïdes tertiaires, et présentent des similarités avec les fibroblastes et les cellules mésenchymateuses [18].
Une analyse détaillée de l’expression de molécule exprimée par les cellules dendritiques folliculaires durant l’organogenèse splénique ainsi que chez des souris dépourvues de cellules dendritiques folliculaires a suggéré que le précurseur le plus précoce des cellules dendritiques folliculaires était localisé dans l’espace périvasculaire de la rate [19]. Des expériences de traçage de lignée indiquaient que ces cellules étaient en réalité des cellules endothéliales. Selon leur localisation (entourant de petits capillaires ou des vaisseaux plus grands) et leur apparence, les cellules endothéliales se divisent en péricytes monocouches ou en cellules musculaires lisses vasculaires en plusieurs couches. Les cellules endothéliales peuvent être isolées à partir de la fraction stromale-vasculaire du tissu adipeux blanc [20]. L’ubiquité de ces cellules périvasculaires et donc, probablement, des précurseurs des cellules dendritiques folliculaires explique également pourquoi il est possible que des cellules dendritiques folliculaires apparaissent dans n’importe quel tissu ou organe [21].
Production de médiateur chimique
Entre-temps, de nombreuses données ont mis en évidence des fonctions importantes des cellules dendritiques folliculaires dans les réponses des lymphocytes B, telles que la production de la chimiokine CXCL13, essentielle pour attirer les lymphocytes B dans les follicules de manière dépendante du récepteur CXCR5 [22]. Cette dépendance est mutuelle entre lymphocytes B et cellules dendritiques folliculaires : en absence de lymphocytes B, les cellules dendritiques folliculaires ne se forment pas [23]. Les lymphocytes B se sont avérées être la principale source de lymphotoxines et du facteur de nécrose tumorale , qui, en se liant à leurs récepteurs respectifs LTβR et TNFR1 présents à la surface des cellules dendritiques folliculaires et de leurs précurseurs, agissent comme de puissants inducteurs de maturation des cellules dendritiques folliculaires [23],[24],[25]. De plus, après la génération initiale des cellules dendritiques folliculaires, un signal lymphotoxinique continu s’est révélé nécessaire pour maintenir leur état différencié et fonctionnel [26].
Le piégeage des complexes immuns: la fonction essentielle des cellules dendritiques folliculaires

Dans la rate (panneau de gauche), les lymphocytes B de la zone marginale capturent des complexes immuns — constitués d’antigène, d’IgM ou d’IgG, et de produits de dégradation du C3 — provenant de la circulation sanguine. Les lymphocytes B de la zone marginale ayant capturé les complexes immuns de manière dépendante du couple C3d/CR2 migrent ensuite dans la zone claire du centre germinatif, où ils transfèrent les complexes immuns aux cellule dendritique folliculaire, qui les lient via C3b et CR1.
Dans le ganglion lymphatique (panneau de droite), les macrophages du sinus sous-capsulaire capturent les complexes immuns provenant de la lymphe. Les macrophages du sinus sous-capsulaire migrent dans la zone claire du centre germinatif et transfèrent les complexes immuns aux lymphocytes B folliculaires d’une manière dépendante de CR2. Ensuite, les lymphocytes B transfèrent les complexes immuns aux cellules dendritiques folliculaires.
Dans les années 1960, les chercheurs observèrent que l’immunisation influençait fortement la distribution de l’antigène : les rats immunisés montraient une accumulation plus rapide et plus intense de l’antigène dans les follicules. Les auteurs conclurent qu’un opsonine, probablement un anticorps, facilitait ce ciblage de l’antigène vers le follicule [27]. D'autres études confirmèrent que la la présence d’anticorps spécifiques de l’antigène apparut essentielle [28].Ce travail, malgré ses limites, montra que le sérum contenait un « opsonine folliculaire », renforçant l’idée que l’anticorps était l’opsonine majeure, mais laissant supposer l’existence d’une autre composante sérique [29]. Il fallut attendre les années 1970 pour que le rôle du complément soit établi par des expériences:
- La déplétion en C3 diminuait fortement les réponses des lymphocytes B dépendantes des lymphocytes T [30].
- L’inhibition du complément empêchait le piégeage d’IgG agrégées dans les follicules de la rate [31].
- La déplétion chronique de C3 inhibait la formation des lymphocytes B mémoire, indiquant que les complexes antigène–anticorps–C3 sur les cellules dendritiques folliculaires étaient cruciaux [32].
Récepteurs CR1 et CR2
Plus tard, les récepteurs complement receptor 1 (CR1) et complement receptor 2 CR2 furent identifiés comme responsables de la capture des complexes immuns contenant C3 [33]. CR2 se lie aux fragments de dégradation de C3, tandis que CR1 se lie à C3b et C4b [34]. Les lymphocytes B expriment toutes CR2, avec des niveaux particulièrement élevés sur les lymphocytes B de la zone marginale. Les cellules dendritiques folliculaires expriment principalement CR1 [35]. Sur les lymphocytes B, CR2 agit comme co-récepteur du récepteur des lymphocytes B. Les cellules dendritiques folliculaires utilisent CR1/CR2 pour retenir les antigènes [33],[35],[36].
Récepteurs Fc
Les cellules dendritiques folliculaires utilisent également des récepteurs Fc [37],[38]. En résumé, les anticorps spécifiques de l’antigène et le complément sont essentiels pour la livraison de l’antigène aux cellules dendritiques folliculaires. Mais comment l’antigène parvient-il physiquement jusqu’aux cellules dendritiques folliculaires ?
Mécanismes d’acheminement de l’antigène vers les cellules dendritiques folliculaires
Dans la rate
Dans la rate, les lymphocytes B de la zone marginale capturent des complexes immuns contenant de l’immunoglobuline M (IgM-ICs) et les transportent vers les cellules dendritiques folliculaires des follicules, un processus dépendant du complément et des récepteurs CR1/CR2 [39],[40].
Dans le ganglion
Mais comment ce transport a-t-il lieu dans les ganglions lymphatiques, dépourvus de lymphocytes B de la zone marginale ? Des études en microscopie biphotonique l’ont révélé [41],[42]:
- les macrophages du sinus sous-capsulaire (SCS) capturent les ICs arrivant avec la lymphe,
- ces macrophages, faiblement endocytaires, transfèrent les ICs à des lymphocytes B folliculaires via CR1/CR2,
- les lymphocytes B transmettent ensuite les ICs aux cellules dendritiques folliculaires.
Le rôle des complexes immuns fixés aux cellules dendritiques folliculaires dans les réponses des lymphocytes B
Les complexes immuns liés aux cellules dendritiques folliculaires sont organisés en formations en chapelet, appelées iccosomes. Ces structures recouvertes de complexes immuns peuvent être endocytées par les macrophages à corps tingibles ainsi que par les lymphocytes B [43]. L’effet des complexes immuns fixés aux cellules dendritiques folliculaires sur l’activation des lymphocytes B, le développement des centres germinatifs , la maturation d’affinité et le maintien des lymphocytes B mémoire a été étudié en profondeur et il est généralement admis que les cellules dendritiques folliculaires fonctionnent comme des réservoirs d’antigènes natifs [44].
Au cours de la réaction du centre germinatif, les lymphocytes B à haute affinité accèdent à l’antigène, l’internalisent, le traitent et le présentent aux lymphocytes T auxiliaires, recevant ainsi à la fois une stimulation via le récepteur des lymphocytes T et des signaux de survie dérivés des lympHocytes T auxiliaires [45],[46]. Les cellules dendritiques folliculaires stimulent les lymphocytes B via l’antigène fixé à leur surface, mais aussi via des produits FDC indépendants de l’antigène [47]. L'absence d’IgM sécrétée, le piégeage antigénique par les cellules dendritiques folliculaires était réduit, et la formation des centres germinatifs ainsi que la maturation d’affinité des anticorps étaient altérées [48]. Le fait que les cellules dendritiques folliculaires participent activement à l’activation des lymphocytes B, jouent un rôle important dans la maturation d’affinité par l’exposition d’antigène natif et contribuent au développement des lymphocytes B mémoire est devenue largement acceptée.
Sources
- Kranich J and Krautler NJ (2016) How Follicular Dendritic Cells Shape the B-Cell Antigenome. Front. Immunol. 7:225. El Shikh MEM. and Pitzalis C (2012) Follicular dendritic cells in health and disease. Front. Immun. 3:292. https://doi.org/10.3389/fimmu.2016.00225
- El Shikh MEM. and Pitzalis C (2012) Follicular dendritic cells in health and disease. Front. Immun. 3:292. https://doi.org/10.3389/fimmu.2012.00292
Références
- ↑ Mitchell J Abbot A . Ultrastructure of the antigen-retaining reticulum of lymph node follicles as shown by high-resolution autoradiography. Nature (1965) 208(5009):500–2.10.1038/208500b0
- ↑ Nossal GJ Ada GL Austin CM . Antigens in immunity. IV. Cellular localization of 125-I- and 131-I-labelled flagella in lymph nodes. Aust J Exp Biol Med Sci (1964) 42:311–30.10.1038/icb.1964.32
- ↑ (en) J. J. Miller et G. J. V. Nossal, « ANTIGENS IN IMMUNITY », The Journal of Experimental Medicine, vol. 120, no 6, , p. 1075–1085 (ISSN 1540-9538 et 0022-1007, PMID 14238926, PMCID 2137785, DOI 10.1084/jem.120.6.1075, lire en ligne, consulté le )
- ↑ (en) Judith Mitchell et A. Abbot, « Ultrastructure of the Antigen-retaining Reticulum of Lymph Node Follicles as shown by High-resolution Autoradiography », Nature, vol. 208, no 5009, , p. 500–502 (ISSN 1476-4687, DOI 10.1038/208500b0, lire en ligne, consulté le )
- (en) G. J. V. Nossal, A. Abbot, Judith Mitchell et Z. Lummus, « ANTIGENS IN IMMUNITY », The Journal of Experimental Medicine, vol. 127, no 2, , p. 277–290 (ISSN 1540-9538 et 0022-1007, PMID 4169585, PMCID 2138444, DOI 10.1084/jem.127.2.277, lire en ligne, consulté le )
- ↑ (en) A.K. Szakal et M.G. Hanna, « The ultrastructure of antigen localization and virus-like particles in mouse spleen germinal centers », Experimental and Molecular Pathology, vol. 8, no 1, , p. 75–89 (DOI 10.1016/0014-4800(68)90007-5, lire en ligne, consulté le )
- ↑ (en) R. G. White, V. I. French et J. M. Stark, « A Study Of The Localisation Of A Protein Antigen In The Chicken Spleen And Its Relation To The Formation Of Germinal Centres », Journal of Medical Microbiology, vol. 3, no 1, , p. 65–83 (ISSN 0022-2615 et 1473-5644, DOI 10.1099/00222615-3-1-65, lire en ligne, consulté le )
- (en) L L Chen, A M Frank, J C Adams et R M Steinman, « Distribution of horseradish peroxidase (HRP)-anti-HRP immune complexes in mouse spleen with special reference to follicular dendritic cells. », The Journal of cell biology, vol. 79, no 1, , p. 184–199 (ISSN 0021-9525 et 1540-8140, PMID 701370, PMCID 2110220, DOI 10.1083/jcb.79.1.184, lire en ligne, consulté le )
- (en) Ll Chen, Jc Adams et Rm Steinman, « Anatomy of germinal centers in mouse spleen, with special reference to "follicular dendritic cells" », The Journal of cell biology, vol. 77, no 1, , p. 148–164 (ISSN 0021-9525 et 1540-8140, PMID 659510, PMCID 2110033, DOI 10.1083/jcb.77.1.148, lire en ligne, consulté le )
- ↑ Tew JG Thorbecke GJ Steinman RM . Dendritic cells in the immune response: characteristics and recommended nomenclature (A report from the Reticuloendothelial Society Committee on Nomenclature). J Reticuloendothel Soc (1982) 31(5):371–80.
- ↑ (en) Balthasar A. Heesters, Priyadarshini Chatterjee, Young-A. Kim et Santiago F. Gonzalez, « Endocytosis and Recycling of Immune Complexes by Follicular Dendritic Cells Enhances B Cell Antigen Binding and Activation », Immunity, vol. 38, no 6, , p. 1164–1175 (PMID 23770227, PMCID 3773956, DOI 10.1016/j.immuni.2013.02.023, lire en ligne, consulté le )
- (en) John H. Humphrey, Deirdre Grennan et Vijaya Sundaram, « The origin of follicular dendritic cells in the mouse and the mechanism of trapping of immune complexes on them », European Journal of Immunology, vol. 14, no 9, , p. 859–864 (ISSN 0014-2980 et 1521-4141, DOI 10.1002/eji.1830140916, lire en ligne, consulté le )
- Yoshida K Kaji M Takahashi T van den Berg TK Dijkstra CD . Host origin of follicular dendritic cells induced in the spleen of SCID mice after transfer of allogeneic lymphocytes. Immunology (1995) 84(1):117–26.
- ↑ (en) Bridget R. Glaysher et Neil A. Mabbott, « Isolated lymphoid follicle maturation induces the development of follicular dendritic cells », Immunology, vol. 120, no 3, , p. 336–344 (ISSN 0019-2805 et 1365-2567, PMID 17163957, PMCID 2265896, DOI 10.1111/j.1365-2567.2006.02508.x, lire en ligne, consulté le )
- ↑ (en) Francesca Aloisi et Ricardo Pujol-Borrell, « Lymphoid neogenesis in chronic inflammatory diseases », Nature Reviews Immunology, vol. 6, no 3, , p. 205–217 (ISSN 1474-1733 et 1474-1741, DOI 10.1038/nri1786, lire en ligne, consulté le )
- ↑ (en) Marie-Caroline Dieu-Nosjean, Jérémy Goc, Nicolas A. Giraldo et Catherine Sautès-Fridman, « Tertiary lymphoid structures in cancer and beyond », Trends in Immunology, vol. 35, no 11, , p. 571–580 (DOI 10.1016/j.it.2014.09.006, lire en ligne, consulté le )
- ↑ (en) Katrijn Neyt, Frédéric Perros, Corine H. GeurtsvanKessel et Hamida Hammad, « Tertiary lymphoid organs in infection and autoimmunity », Trends in Immunology, vol. 33, no 6, , p. 297–305 (PMID 22622061, PMCID 7106385, DOI 10.1016/j.it.2012.04.006, lire en ligne, consulté le )
- ↑ (en) In Yong Lee et Jongseon Choe, « Human follicular dendritic cells and fibroblasts share the 3C8 antigen », Biochemical and Biophysical Research Communications, vol. 304, no 4, , p. 701–707 (DOI 10.1016/S0006-291X(03)00649-1, lire en ligne, consulté le )
- ↑ (en) Jan Kranich, Nike Julia Krautler, Ernst Heinen et Magdalini Polymenidou, « Follicular dendritic cells control engulfment of apoptotic bodies by secreting Mfge8 », The Journal of Experimental Medicine, vol. 205, no 6, , p. 1293–1302 (ISSN 1540-9538 et 0022-1007, PMID 18490487, PMCID 2413028, DOI 10.1084/jem.20071019, lire en ligne, consulté le )
- ↑ (en) Wei Tang, Daniel Zeve, Jae Myoung Suh et Darko Bosnakovski, « White Fat Progenitor Cells Reside in the Adipose Vasculature », Science, vol. 322, no 5901, , p. 583–586 (ISSN 0036-8075 et 1095-9203, PMID 18801968, PMCID 2597101, DOI 10.1126/science.1156232, lire en ligne, consulté le )
- ↑ (en) Nike Julia Krautler, Veronika Kana, Jan Kranich et Yinghua Tian, « Follicular Dendritic Cells Emerge from Ubiquitous Perivascular Precursors », Cell, vol. 150, no 1, , p. 194–206 (PMID 22770220, PMCID 3704230, DOI 10.1016/j.cell.2012.05.032, lire en ligne, consulté le )
- ↑ (en) « Follicular stromal cells and lymphocyte homing to follicles », Immunological Reviews, vol. 176, no 1, , p. 181–193 (ISSN 0105-2896 et 1600-065X, DOI 10.1034/j.1600-065X.2000.00618.x, lire en ligne, consulté le )
- (en) Agnes Fütterer, Karin Mink, Arne Luz et Marie H. Kosco-Vilbois, « The Lymphotoxin β Receptor Controls Organogenesis and Affinity Maturation in Peripheral Lymphoid Tissues », Immunity, vol. 9, no 1, , p. 59–70 (DOI 10.1016/S1074-7613(00)80588-9, lire en ligne, consulté le )
- ↑ (en) Yang-Xin Fu et David D. Chaplin, « DEVELOPMENT AND MATURATION OF SECONDARY LYMPHOID TISSUES », Annual Review of Immunology, vol. 17, no 1, , p. 399–433 (ISSN 0732-0582 et 1545-3278, DOI 10.1146/annurev.immunol.17.1.399, lire en ligne, consulté le )
- ↑ (en) Pandelakis A Koni, Rosalba Sacca, Pornsri Lawton et Jeffrey L Browning, « Distinct Roles in Lymphoid Organogenesis for Lymphotoxins α and β Revealed in Lymphotoxin β–Deficient Mice », Immunity, vol. 6, no 4, , p. 491–500 (DOI 10.1016/S1074-7613(00)80292-7, lire en ligne, consulté le )
- ↑ (en) Fabienne Mackay, Gerard R. Majeau, Pornsri Lawton et Paula S. Hochman, « Lymphotoxin but not tumor necrosis factor functions to maintain splenic architecture and humoral responsiveness in adult mice », European Journal of Immunology, vol. 27, no 8, , p. 2033–2042 (ISSN 0014-2980 et 1521-4141, DOI 10.1002/eji.1830270830, lire en ligne, consulté le )
- ↑ Nossal GJ Ada GL Austin CM Pye J . Antigens in immunity. 8. Localization of 125-I-labelled antigens in the secondary response. Immunology (1965) 9(4):349–57.
- ↑ Humphrey JH Frank MM . The localization of non-microbial antigens in the draining lymph nodes of tolerant, normal and primed rabbits. Immunology (1967) 13(1):87–100.
- ↑ Williams GM . Antigen localization in lymphopenic states. II. Further studies on whole body x-irradiation. Immunology (1966) 11(5):475–88.
- ↑ (en) M. B. Pepys, « ROLE OF COMPLEMENT IN INDUCTION OF ANTIBODY PRODUCTION IN VIVO », The Journal of Experimental Medicine, vol. 140, no 1, , p. 126–145 (ISSN 1540-9538 et 0022-1007, PMID 4545894, PMCID 2139695, DOI 10.1084/jem.140.1.126, lire en ligne, consulté le )
- ↑ (en) M. Papamichail, C. Gutierrez, P. Embling et P. Johnson, « Complement Dependence of Localisation of Aggregated IgG in Germinal Centres », Scandinavian Journal of Immunology, vol. 4, no 4, , p. 343–347 (ISSN 0300-9475 et 1365-3083, DOI 10.1111/j.1365-3083.1975.tb02635.x, lire en ligne, consulté le )
- ↑ Klaus GG Humphrey JH . The generation of memory cells. I. The role of C3 in the generation of B memory cells. Immunology (1977) 33(1):31–40.
- Fang Y Xu C Fu YX Holers VM Molina H . Expression of complement receptors 1 and 2 on follicular dendritic cells is necessary for the generation of a strong antigen-specific IgG response. J Immunol (1998) 160(11):5273–9.
- ↑ (en) Ramon Roozendaal et Michael C. Carroll, « Complement receptors CD21 and CD35 in humoral immunity », Immunological Reviews, vol. 219, no 1, , p. 157–166 (ISSN 0105-2896 et 1600-065X, DOI 10.1111/j.1600-065X.2007.00556.x, lire en ligne, consulté le )
- (en) Luke R Donius, Jennifer M Handy, Janis J Weis et John H Weis, « Optimal Germinal Center B Cell Activation and T-Dependent Antibody Responses Require Expression of the Mouse Complement Receptor Cr1 », The Journal of Immunology, vol. 191, no 1, , p. 434–447 (ISSN 0022-1767 et 1550-6606, PMID 23733878, PMCID 3707406, DOI 10.4049/jimmunol.1203176, lire en ligne, consulté le )
- ↑ Qin D Wu J Carroll MC Burton GF Szakal AK Tew JG . Evidence for an important interaction between a complement-derived CD21 ligand on follicular dendritic cells and CD21 on B cells in the initiation of IgG responses. J Immunol (1998) 161(9):4549–54.
- ↑ (en) Dahui Qin, Jiuhua Wu, Kalpit A. Vora et Jeffrey V. Ravetch, « Fcγ Receptor IIB on Follicular Dendritic Cells Regulates the B Cell Recall Response », The Journal of Immunology, vol. 164, no 12, , p. 6268–6275 (ISSN 0022-1767 et 1550-6606, DOI 10.4049/jimmunol.164.12.6268, lire en ligne, consulté le )
- ↑ Yoshida K van den Berg TK Dijkstra CD . Two functionally different follicular dendritic cells in secondary lymphoid follicles of mouse spleen, as revealed by CR1/2 and FcR gamma II-mediated immune-complex trapping. Immunology (1993) 80(1):34–9.
- ↑ (en) A. R. Ferguson, « Marginal zone B cells transport and deposit IgM-containing immune complexes onto follicular dendritic cells », International Immunology, vol. 16, no 10, , p. 1411–1422 (ISSN 1460-2377, DOI 10.1093/intimm/dxh142, lire en ligne, consulté le )
- ↑ (en) Guy Cinamon, Marcus A Zachariah, Olivia M Lam et Frank W Foss, « Follicular shuttling of marginal zone B cells facilitates antigen transport », Nature Immunology, vol. 9, no 1, , p. 54–62 (ISSN 1529-2908 et 1529-2916, PMID 18037889, PMCID 2488964, DOI 10.1038/ni1542, lire en ligne, consulté le )
- ↑ (en) Tri Giang Phan, Jesse A Green, Elizabeth E Gray et Ying Xu, « Immune complex relay by subcapsular sinus macrophages and noncognate B cells drives antibody affinity maturation », Nature Immunology, vol. 10, no 7, , p. 786–793 (ISSN 1529-2908 et 1529-2916, PMID 19503106, PMCID 2776777, DOI 10.1038/ni.1745, lire en ligne, consulté le )
- ↑ (en) Tri Giang Phan, Irina Grigorova, Takaharu Okada et Jason G Cyster, « Subcapsular encounter and complement-dependent transport of immune complexes by lymph node B cells », Nature Immunology, vol. 8, no 9, , p. 992–1000 (ISSN 1529-2908 et 1529-2916, DOI 10.1038/ni1494, lire en ligne, consulté le )
- ↑ Szakal AK Kosco MH Tew JG . A novel in vivo follicular dendritic cell-dependent iccosome-mediated mechanism for delivery of antigen to antigen-processing cells. J Immunol (1988) 140(2):341–53.
- ↑ (en) Christopher D.C. Allen et Jason G. Cyster, « Follicular dendritic cell networks of primary follicles and germinal centers: Phenotype and function », Seminars in Immunology, vol. 20, no 1, , p. 14–25 (PMID 18261920, PMCID 2366796, DOI 10.1016/j.smim.2007.12.001, lire en ligne, consulté le )
- ↑ MacLennan IC . Germinal centers. Annu Rev Immunol (1994) 12:117–39.10.1146/annurev.iy.12.040194.001001
- ↑ Victora GD Nussenzweig MC . Germinal centers. Annu Rev Immunol (2012) 30:429–57.10.1146/annurev-immunol-020711-075032
- ↑ Wu J Qin D Burton GF Szakal AK Tew JG . Follicular dendritic cell-derived antigen and accessory activity in initiation of memory IgG responses in vitro. J Immunol (1996) 157(8):3404–11. Pubm
- ↑ Boes M Esau C Fischer MB Schmidt T Carroll M Chen J . Enhanced B-1 cell development, but impaired IgG antibody responses in mice deficient in secreted IgM. J Immunol (1998) 160(10):4776–87.
 Portail de la biologie