Rhizocephala
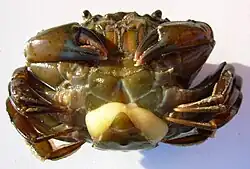
I Rhizocephala sono cirripedi parassiti altamente modificati che provocano castrazione parassitaria negli ospiti. Gli ospiti sono soprattutto crostacei decapodi, ma includono anche Peracarida, stomatopodi balani. Il loro habitat va dal piano abissale alle acque dolci.[1][2] Insieme ai loro sister group Thoracica e Acrothoracica formano la sottoclasse Cirripedia[3].
Il loro piano corporeo è fortemente ridotto in un adattamento estremo al loro stile di vita parassitario e rende la loro relazione con altri cirripedi irriconoscibile nella forma adulta. Mostrano anche il dimorfismo sessuale più estremo tra tutti gli animali conosciuti. Le femmine sono parassiti che si iniettano in un ospite e ne prendono il controllo attraverso una rete di filamenti, mentre i maschi sono iperparassiti che si iniettano in una femmina già insediata e cessano di esistere come organismi indipendenti attraverso la degenerazione di tutti i tessuti tranne quelli responsabili della spermatogenesi[4].
Il nome Rhizocephala deriva dal greco antico ῥίζα ("radice") e κεφαλή ("testa"), che descrive la femmina adulta, costituita principalmente da una rete di estensioni filiformi che penetrano nel corpo dell'ospite[5].
Descrizione
Adulto

Nei rizocefali adulti mancano le appendici, la segmentazione, e tutti gli organi interni tranne le gonadi, alcuni muscoli e resti del sistema nervoso. Le femmine hanno una cuticola.[6]
Larve: nauplio e cypris
I naupli rilasciati dalla femmina nuotano per diversi giorni senza alimentarsi dato che sono privi di bocca e di apparato digerente e si trasformano in cypris dopo alcune mute Come i naupli, le cypris non si alimentano[7].
Biologia
Parassitismo
I crostacei rizocefali erano tradizionalmente suddivisi in Kentrogonida, con uno stadio kentrogonico, e Akentrogonida, che ne sono privi. Tuttavia, i dati molecolari dimostrano che questi gruppi sono parafiletici, quindi possono essere considerati solo come tipi di sviluppo piuttosto che come ordini[8]. La larva cypris femmina dei Kentrogonida si insedia su un ospite e si metamorfosa in una forma giovanile specializzata, il kentrogon. Il kentrogon non presenta segmentazione visibile né appendici, ad eccezione delle antennule. Queste ultime servono per far aderire la larva all'ospite; il loro unico scopo è quello di iniettare una massa cellulare, il vermigon, nell'emolinfa dell'ospite attraverso uno stiletto cavo retrattile situato sulla testa. Lo stadio di kentrogon sembra essere stato secondariamente perso in tutti gli Akentrogonida, dove la cypris inietta il vermigon attraverso una delle antennule[9]. Il vermigon cresce formando una rete di filamenti simili a radici nel tessuto dell'ospite, in particolare nel sistema digerente e soprattutto nell'epatopancreas, e assorbe i nutrienti dall'emolinfa. La rete di filamenti è chiamata interna. La femmina sviluppa quindi un'externa a forma di sacca, costituita da un mantello, una cavità del mantello, un'ovario e una coppia di canali noti come recettacoli cellulari. L'externa fuoriesce dall'addome dell'ospite[10][11][12].
Nell'ordine Kentrogonida, l'externa vergine inizialmente non presenta aperture. Tuttavia, presto muta in un secondo stadio che presenta un orifizio che conduce ai due ricettacoli, un tempo ritenuti testicoli prima che si scoprisse che in realtà si trattava di due sessi separati, e inizia a rilasciare feromoni per attirare le larve cypris maschili. Dall'interno del corpo del cypris maschile che riesce a entrare nell'apertura, emerge attraverso l'apertura dell'antenna un stadio maschile unico e di brevissima durata chiamato trichogen. È l'omologo del kentrogon femmina, ma è ridotto a una massa di cellule ameboide non segmentata ricoperta da una cuticola, composta da tre o quattro tipi di cellule: dorsolaterali, epidermiche ventrali, cellule di inclusione e postganglio. L'externa ha spazio per due maschi, uno per ciascuno dei ricettacoli, il che aumenta l'eterozigosi della prole. Una volta all'interno, il trichogen perde la cuticola prima di raggiungere la fine del ricettacolo[13][14][15].
Nell'ordine Akentrogonida, che forma un gruppo monofiletico all'interno del gruppo parafiletico Kentrogonida,[16] il maschio non si sviluppa in trichogon, e la cypris inietta la sua massa cellulare attraverso le antennule direttamente nel corpo dell'externa immatura. Anche la prole si schiude direttamente come larve cypris completamente sviluppate invece che come naupli (ad eccezione di alcune specie i kentrogonidi hanno conservato lo stadio naupliare). In specie come Clistosaccus paguri, il maschio inietta il suo gruppo di cellule che migra attraverso il tessuto connettivo del mantello e del ricettacolo. Ma in forme come Sylon hippolytes il ricettacolo è assente e le cellule maschili si impiantano direttamente nell'ovario[17]. Mentre solo un singolo maschio può insediarsi in ciascun ricettacolo, come è norma nei Kentrogonida, il numero di maschi impiantati negli Akentrogonida può variare da uno a più di dieci[18].
Riproduzione
Nei Kentrogonida il piccolo gruppo di cellule iniettate dal cypris maschio si differenzia in una massa debolmente connessa di cellule germinali produttrici di sperma, una volta raggiunta la destinazione all'interno della femmina. Essendo nient'altro che cellule produttrici di sperma, questi rizocefali maschi adulti rappresentano la forma più semplice di maschio nell'intero regno animale. L'externa della femmina matura rilascia le uova nella cavità del mantello dove vengono fecondate dallo sperma del maschio o dei maschi iperparassiti. Sono apparentemente l'unico gruppo di crostacei in cui esiste un dimorfismo sessuale nelle larve, con i naupli maschili generalmente più grandi di quelli femminili[8]. A causa del dimorfismo sessuale larvale nei Kentrogonida, le femmine producono uova di due dimensioni diverse: uova femminili piccole e uova maschili più grandi[19][20]. Sembra che la determinazione del sesso negli Akentrogonida sia dovuta all'ambiente[21].
L'externa è situata nella posizione dove si troverebbe la sacca delle uova dell'ospite, e il comportamento dell'ospite è alterato chimicamente: viene castrato e non muta fino a quando l'externa matura non cade. L'ospite si prende cura dell'externa come se fosse la propria sacca delle uova[10]. Questo comportamento si riscontra anche nei maschi, che non trasportano le uova, ma si prendono cura dell'externa allo stesso modo delle femmine[10].
Tassonomia
A seguito di una classificazione aggiornata dei cirripedi da parte di Chan et al. (2021), i sottogruppi Akentrogonida e Kentrogonida sono stati eliminati, lasciando 13 famiglie come sottogruppi dell'infraclasse Rhizocephala[3][22]:
- Chthamalophilidae Bocquet-Védrine, 1961
- Clistosaccidae Boschma, 1928
- Duplorbidae Høeg & Rybakov, 1992
- Mycetomorphidae Høeg & Rybakov, 1992
- Parthenopeidae Rybakov & Høeg, 2013
- Peltogasterellidae Høeg & Glenner, 2019
- Peltogastridae Lilljeborg, 1861
- Pirusaccidae Høeg & Glenner, 2019
- Polyascidae Høeg & Glenner, 2019
- Polysaccidae Lützen & Takahashi, 1996
- Sacculinidae Lilljeborg, 1861
- Thompsoniidae Høeg & Rybakov, 1992
- Triangulidae Høeg & Glenner, 2019
Filogenesi
I Rhizocephala non sono noti allo stato fossile.[23]
Il seguente cladogramma mostra le relazioni filogenetiche dei Cirripedia all'interno dei Thecostraca aggiornata al 2021[3]
| Thecostraca |
| ||||||||||||||||||||||||
Il seguente cladogramma riassume le relazioni interne dei Rhizocephala al 2020,[24] così come il numero di specie in ciascuna famiglia. L'albero non è del tutto completo[25].
| Rhizocephala |
| |||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||
Note
- ↑ Pérez-Losada M., Høeg J.T. e Crandall K.A., Remarkable convergent evolution in specialized parasitic Thecostraca (Crustacea), in BMC Biology, vol. 7, 2009, p. 15, DOI:10.1186/1741-7007-7-15.
- ↑ Walker G., Introduction to the Rhizocephala (Crustacea: Cirripedia), in Journal of Morphology, vol. 249, n. 1, 2001, pp. 1–8, DOI:10.1002/jmor.1038.
- 1 2 3 M. Perez-Losada, J.T. Hoeg e K. A. Crandall, Deep Phylogeny and Character Evolution in Thecostraca (Crustacea: Maxillopoda), in Integrative and Comparative Biology, vol. 52, n. 3, 2012, pp. 430–442, DOI:10.1093/icb/ics051.
- ↑ (EN) Korn O.M. e Golubinskaya D.D., Larvae of Rhizocephalans with a Kentrogonid Type of Development and their Significance in the Taxonomy and Phylogeny of Parasitic Crustaceans, in Russian Journal of Marine Biology, vol. 47, n. 5, 2021, pp. 325–336, DOI:10.1134/S1063074021050072.
- ↑ Etymology of the Latin word Rhizocephala, su myetymology.com, MyEtymology. URL consultato il 24 giugno 2011 (archiviato dall'url originale il 5 ottobre 2011).
- ↑ Bresciani J. e Høeg J.T., Comparative ultrastructure of the root system in Rhizocephalan barnacles (Crustacea: Cirripedia: Rhizocephala), in Journal of Morphology, vol. 249, n. 1, 2001, pp. 9–42, DOI:10.1002/jmor.1039.
- ↑ Joel W. Martin, Jørgen Olesen, Jens T. Høeg e Jens Høeg, Atlas of Crustacean Larvae, JHU Press, 2014, p. 99, ISBN 978-1-4214-1197-2.
- 1 2 (EN) Korn O.M. e Golubinskaya D.D., Larvae of Rhizocephalans with a Kentrogonid Type of Development and their Significance in the Taxonomy and Phylogeny of Parasitic Crustaceans, in Russian Journal of Marine Biology, vol. 47, n. 5, 2021, pp. 325–336, DOI:10.1134/S1063074021050072.
- ↑ Henrik Glenner e Jens T. Høeg, A Scenario for the Evolution of the Rhizocephala (PDF), in Modern Approaches to the Study of Crustacea, 2002, pp. 301–310, DOI:10.1007/978-1-4615-0761-1_42, ISBN 978-1-4613-5228-0.
- 1 2 3 Henrik Glenner e Jens T. Høeg, A scenario for the evolution of the Rhizocephala, in Elva Escobar-Briones & Fernando Alvarez (a cura di), Modern Approaches to the Study of Crustacea, Springer, 2002, pp. 301–310, ISBN 978-0-306-47366-1.
- ↑ V. Elumalai, C. Viswanathan, M. Pravinkumar e S. M. Raffi, Infestation of parasitic barnacle Sacculina spp. in commercial marine crabs, in Journal of Parasitic Diseases, vol. 38, n. 3, 2014, pp. 337–339, DOI:10.1007/s12639-013-0247-z.
- ↑ Christoph Noever, Jonas Keiler e Henrik Glenner, First 3D reconstruction of the rhizocephalan root system using MicroCT, in Journal of Sea Research, vol. 113, 2016, pp. 58–64, DOI:10.1016/j.seares.2015.08.002.
- ↑ J. T. Hoeg, Male Cypris Metamorphosis and a New Male Larval Form, The Trichogon, in the Parasitic Barnacle Sacculina carcini (Crustacea: Cirripedia: Rhizocephala), in Philosophical Transactions of the Royal Society B: Biological Sciences, vol. 317, n. 1183, 1987, pp. 47–63, DOI:10.1098/rstb.1987.0047.
- ↑ Stephen Jay Gould, Leonardo's Mountain Of Clams, Random House, 2010, p. 315, ISBN 978-1-4090-0038-9.
- ↑ Klepal Waltraud, A Review of the comparative anatomy of the males in cirripedes, in Oceanography And Marine Biology, CRC Press, 1999, pp. 250–304, ISBN 978-0-203-40068-5.
- ↑ Glenner H,, Høeg, Stenderup J. e Rybakov A.V., The monophyletic origin of a remarkable sexual system in akentrogonid rhizocephalan parasites: A molecular and larval structural study, in Experimental Parasitology, vol. 125, n. 1, 2010, pp. 3–12, DOI:10.1016/j.exppara.2009.09.019.
- ↑ Peter Castro, Peter Davie, Danièle Guinot, Frederick Schram e Carel von Vaupel Klein, Fig. 71-12.24. Rhizocephalan life cycle: A-J, life cycle of the akentrogonid rhizocephalan, in Treatise on Zoology - Anatomy, Taxonomy, Biology. The Crustacea, Volume 9 Part C (2 vols): Brachyura, BRILL, 2015, p. 714, ISBN 978-90-04-19083-2.
- ↑ Thiel M. e Wellborn G., The Natural History of the Crustacea: Life Histories, Oxford University Press, 2018, p. 385, ISBN 978-0-19-062028-8.
- ↑ Nagler C., Hörnig M.K., Haug J.T., Noever C., Høeg e Glenner H., The bigger, the better? Volume measurements of parasites and hosts: Parasitic barnacles (Cirripedia, Rhizocephala) and their decapod hosts, in PLOS ONE, vol. 12, n. 7, 2017, p. e0179958, DOI:10.1371/journal.pone.0179958.
- ↑ Korn O.M., Shukalyuk A.I., Trofimova A.V. e Isaeva V.V., Reproductive Stage of the Life Cycle in the Rhizocephalan Barnacle Polyascus polygenea (Crustacea: Cirripedia), in Russian Journal of Marine Biology, vol. 30, n. 5, 2004, pp. 328–340, DOI:10.1023/B:RUMB.0000046552.07712.02.
- ↑ Janet L. Leonard, Phylogenetic Character Distribution, in Transitions Between Sexual Systems: Understanding the Mechanisms Of, and Pathways Between, Dioecy, Hermaphroditism and Other Sexual Systems, Springer, 2018, pp. 224–5, ISBN 978-3-319-94139-4.
- ↑ (EN) Boyko, C.B. (2025). World List of Rhizocephala., Rhizocephala, in WoRMS (World Register of Marine Species). URL consultato il 7 gennaio 2026.
- ↑ Morris S.C., Parasites and the fossil record, in Parasitology, vol. 82, n. 3, Cambridge University Press, 1981, pp. 489–509, DOI:10.1017/s0031182000067020.
- ↑ T. Høeg J., Noever C., A. Rees D., A. Crandall K. e Glenner H., A new molecular phylogeny-based taxonomy of parasitic barnacles (Crustacea: Cirripedia: Rhizocephala), in Zoological Journal of the Linnean Society, vol. 190, n. 2, 2020, pp. 632–653, DOI:10.1093/zoolinnean/zlz140.
- ↑ Chan B.K.K., Dreyer N., Gale A.S., Glenner H., Ewers-Saucedo C., Pérez-Losada M., Kolbasov G.A., Crandall K.A. e Høeg J.T., The evolutionary diversity of barnacles, with an updated classification of fossil and living forms, in Zoological Journal of the Linnean Society, vol. 193, n. 1, 2021, pp. 789–846, DOI:10.1093/zoolinnean/zlaa160.
Altri progetti
 Wikimedia Commons contiene immagini o altri file su Rhizocephala
 Wikispecies contiene informazioni su Rhizocephala
Collegamenti esterni
- (EN) Rhizocephala, su Enciclopedia Britannica, Encyclopædia Britannica, Inc.
- (EN) Rhizocephala, su Fossilworks.org.
- (EN) Rhizocephala, su ITIS.
- (EN) Rhizocephala, su WoRMS.
| Controllo di autorità | J9U (EN, HE) 987007544044205171 |
|---|