Bahieae
| Bahieae | |
|---|---|
 | |
| Classificazione APG IV | |
| Dominio | Eukaryota |
| Regno | Plantae |
| (clade) | Angiosperme |
| (clade) | Mesangiosperme |
| (clade) | Eudicotiledoni |
| (clade) | Eudicotiledoni centrali |
| (clade) | Superasteridi |
| (clade) | Asteridi |
| (clade) | Euasteridi |
| (clade) | Campanulidi |
| Ordine | Asterales |
| Famiglia | Asteraceae |
| Sottofamiglia | Asteroideae |
| Tribù | Bahieae B.G.Baldwin, 2002 |
| Classificazione Cronquist | |
 taxon non contemplato | |
| Generi | |
(vedi testo)
| |
Bahieae B.G.Baldwin, 2002 è una tribù di piante angiosperme eudicotiledoni della famiglia delle Asteracee (sottofamiglia Asteroideae).[1][2]
Etimologia
Il nome della tribù deriva dal suo genere Bahia Lag., 1816 (ora obsoleto[3]), ed è dedicato al professore di botanica a Barcellona J.F. Bahi (1775-1841).[4]
Il nome scientifico è stato definito dal botanico contemporaneo Bruce Gregg Baldwin (1957-) nella pubblicazione "Systematic Botany; Quarterly Journal of the American Society of Plant Taxonomists - 27 (1): 192. 2002" del 2002.[5]
Descrizione
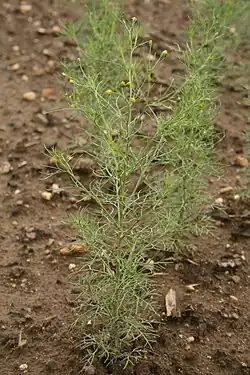
Schkuhria pinnata

Palafoxia arida

Hymenopappus filifolius

Hymenothrix pedata
Portamento. Le specie di questa tribù hanno un habitus erbaceo (raramente sono arbusti). Alcune specie subalpine o delle praterie secche formano dei cespugli legnosi (habitus cespitoso). Il ciclo biologico è annuale o perenne e sono piante prive di lattice.[6][7][8][9][10]
Fusto. La parte aerea in genere è eretta, semplice o ramosa.
Foglie. Le foglie lungo il caule possono avere una disposizione alternata oppure opposta (meno spesso). Possono essere sessili o picciolate. La lamina in genere è intera con forme che vanno da ovate a lanceolate o lineari. In alcuni generi sono 1-4- pennate.
Infiorescenza. Le sinflorescenze sono composte da capolini a forma discoide o radiata di dimensioni piccole e medie (raramente grandi). I capolini possono essere terminali, scaposi o sub-scaposi, oppure raccolti in forme panicolate lasse, o raramente in corimbi scomposti. Il capolino, come in tutte le Asteraceae, è formato da un involucro composto da brattee al cui interno un ricettacolo fa da base ai fiori (periferici del raggio e interni del disco). L'involucro in genere ha una forma cilindrica o ob-conica o semisferica. Le brattee sono disposte su 1 – 4 serie in modo embricato, alcune con margini di tipo ialino e altre prive di tali margini. Le dimensioni delle brattee tra di loro sono sub-uguali o anche di varie lunghezze scalate. Spesso sono provviste di abbondanti tricomi ghiandolari sulla faccia abassiale. Il ricettacolo varia da piatto a convesso ed è privo di pagliette a protezione della base dei fiori.
Fiori. I fiori sono tetra-ciclici (formati cioè da 4 verticilli: calice – corolla – androceo – gineceo) e pentameri (calice e corolla formati da 5 elementi). Si distinguono in:
- fiori del raggio (esterni): sono femminili e sono disposti su una o più serie; la forma è ligulata (zigomorfa); a volte sono assenti;
- fiori del disco (centrali): sono più numerosi con forme brevemente tubulose (attinomorfe); sono ermafroditi o (raramente) funzionalmente maschili.
- */x K , [C (5), A (5)], G 2 (infero), achenio[11]

- fiori del raggio: la forma della corolla alla base è più o meno tubulosa-imbutiforme, mentre all'apice è ligulata terminante con 2 – 3 lobi o denti; sono colorati di giallo-arancio o bianco (a volte anche rosa-violaceo);
- fiori del disco: la forma è tubulare bruscamente divaricata in alcuni lobi; i fiori sono pentameri (5 lobi), raramente tetrameri; i lobi, patenti o eretti, con forme deltate o più o meno lanceolate, a volte sono uguali e a volte sono di lunghezza differente; il colore è giallo o bianco (a volte rosa-violaceo).
- Androceo: l'androceo è formato da 5 stami sorretti da filamenti generalmente liberi; gli stami sono connati e formano un manicotto circondante lo stilo. L'appendice apicale delle antere è ovata, raramente cocleata (a forma di chiocciola), con o senza tricomi ghiandolari sulla superficie abassiale. Le teche non sono calcarate (sono cioè prive di speroni) e sono senza coda. La cavità delle antere (endotecio) può essere formato da celle quadrate o fusiformi con 1 – 4 ispessimenti polari (raramente radiali come in Chamaechaenactis). Il polline è del tipo echinato (con punte sporgenti) a forma sferica.
- Gineceo: l'ovario è infero uniloculare formato da 2 carpelli. Lo stilo è snello, bifido con apici deltati e acuminati. È pubescente per peli corti o papilloso alla base, mentre al di sotto alla biforcazione può essere glabro. Gli stigmi sono provvisti di superfici stigmatiche strette o ampie (talvolta si toccano), ma non confluenti all'apice (in genere sono marginali).
Frutti. I frutti sono degli acheni con pappo persistente. La forma dell'achenio può essere da ob-piramidale a affusolata con 4 – 5 lati; ma anche biconvessa e ob-compressa. L'achenio di solito è striato con strati di fitomelanina (le Bahieae appartengono al clade Phytomelanic cipsela[12]) Il pappo è formato da setole o scaglie. Le scaglie possono essere ispessite alla base o con prominenti nervature centrali anche queste ispessite. Le setole possono essere assenti o multiple.
Biologia
Impollinazione: l'impollinazione avviene tramite insetti (impollinazione entomogama tramite farfalle diurne e notturne).[7][8]
Riproduzione: la fecondazione avviene fondamentalmente tramite l'impollinazione dei fiori (vedi sopra).
Dispersione: i semi (gli acheni) cadendo a terra sono successivamente dispersi soprattutto da insetti tipo formiche (disseminazione mirmecoria). In questo tipo di piante avviene anche un altro tipo di dispersione: zoocoria. Infatti gli uncini delle brattee dell'involucro (se presenti) si agganciano ai peli degli animali di passaggio disperdendo così anche su lunghe distanze i semi della pianta. Inoltre per merito del pappo (se presente) il vento può trasportare i semi anche a distanza di alcuni chilometri (disseminazione anemocora).
Distribuzione e habitat
La distribuzione delle specie di questa tribù è soprattutto relativa all'America del Nord (aree sud-occidentali), ma anche delle zone temperate montane del Sud America, Africa (tropicale) e isole del Pacifico del Sud. Alcuni specie sono endemiche, come il genere monotipo Apostates che si trova solamente nell'Isola di Pasqua e nella Polinesia francese.
Tassonomia
La famiglia delle Asteracee (o Compositae, nomen conservandum) è la più numerosa del mondo vegetale, comprende oltre 23000 specie distribuite su 1535 generi,[11] oppure 22750 specie e 1530 generi secondo altre fonti[13] (una delle checklist più aggiornata elenca fino a 1679 generi).[14] La famiglia attualmente (2021) è divisa in 16 sottofamiglie; la sottofamiglia Asteroideae è una di queste e rappresenta l'evoluzione più recente di tutta la famiglia.[1][9][10]
Filogenesi
La tribù di questa voce è una delle 21 tribù della sottofamiglia Asteroideae). Da un punto di vista filogenetico, la tribù Bahieae fa parte del supergruppo "Asteroideae grade" (o supertribù "Asteroidae"); l'altro è il supergruppo "Non-Asteroideae" contenente il resto delle sottofamiglie delle Asteracee. All'interno del supergruppo è vicina alle tribù Senecioneae, Calenduleae, Gnaphalieae e Astereae.[15][16]
Nella sua classificazione delle Asteracee del 1981, Harold Ernest Robinson considera le Bahiinae all'interno della sottotribù delle Chaenactidinae (tribù Heliantheae).[17] La tribù, nella descrizione attuale, è stata nominata da Baldwin (Baldwin et al. 2002) separando dalla tribù Helenieae i generi provvisti di un pappo di scaglie con costole ispessite e cipsele con superfici striate.
Recenti studi filogenetici, all'interno della sottofamiglia Asteroidea, hanno individuato un clade denominato Phytomelanic cipsela o chiamato anche gruppo "Heliantheae Alliance" (o anche "Helianthodae-Phytomelanic cipsela clade"), caratterizzato dalla presenza nella cipsela di uno strato di fitomelanina. Il clade comprende le seguenti tribù: Coreopsideae, Heliantheae sensu stricto, Chaenactideae, Madieae, Millerieae, Neurolaeneae, Perityleae, Polymnieae, Tageteae, Eupatorieae e anche Bahieae.[12]
I caratteri distintivi del gruppo "Heliantheae Alliance" sono:[18]
- la disposizione delle brattee (o squame) dell'involucro è di solito è su 1 – 3 serie;
- le teche delle antere sono spesso annerite e non sono calcarate (sono prive di speroni) e inoltre sono prive di code;
- stilo ha un ciuffo di peli appena sotto la divisione degli stigmi;
- le appendici dello stilo (stigmi) di solito sono più brevi delle zone stigmatiche;
- gli acheni sono provvisti di strati di fitomelanina.
I rapporti filogenetici tra le varie tribù di tale raggruppamento sono illustrati dal seguente cladogramma tratto dallo studio citato:
| Phytomelanic cipsela clade |
| |||||||||||||||||||||||||||||||||||||||||||||||||||||||||
L'origine e la distribuzione è principalmente nel Nuovo Mondo (Nord e Sud America), con alcuni casi di dispersione a lunga distanza verso l’Africa e il Pacifico. All'interno della tribù la sistemazione dei vari generi è dovuta in gran parte ai recenti studi di tipo filogenetico sia su dati morfologici che molecolari. Ad esempio le specie del genere Amauriopsis sono incluse nel genere Hymenothrix.[19] Analisi di tipo nucleare sul rDNA suggeriscono raggruppamenti interni come ad esempio quello di Chamaechaenactis, Barltettia e Hymenopappus[20], oppure il genere Florestina con il genere Palafoxia[21], oppure Schkuhria con Achyropappus.[22]. Per il momento all'interno della tribù sono riconosciuti con sicurezza solamente tre cladi principali:[23]
| Clade | Generi principali | Caratteri distintivi | Distribuzione |
|---|---|---|---|
| Clade Bahia | Picradeniopsis, Florestina, Hymenothrix, Palafoxia, Schkuhria, Achyropappus, Platyschkuhria | Differenze nella fillotassi (foglie opposte oppure alterne) | Nord e Centro America |
| Clade Chaetymenia | Chaetymenia, Espejoa, Hypericophyllum | Brattee involucrali con margini ialini | Dispersione transatlantica: dal Messico verso l'Africa |
| Clade Peucephyllum | Peucephyllum, Psathyrotopsis | Arbusti xerofitici e pappo setoloso | Deserti del Nord America |
| Generi problematici | Apostates | Foglie opposte, arbusto insulare | Caso di dispersione estrema (isola di Rapa) |
Si devono quindi attendere ulteriori studi per una più esatta circoscrizione dei vari generi all'interno della tribù.
Un discorso a parte va fatto per il genere Bahia. Inizialmente era considerato il "genere tipo" della tribù. In successivi studi filogenetici, è stato dimostrato che il genere Bahia, come tradizionalmente inteso, non costituiva un gruppo monofiletico (naturale) con gli altri membri delle Bahieae, ma mostrava invece una stretta affinità con i generi della tribù Madieae, in particolare con il genere Eriophyllum (del quale è diventato sinonimo[24]). Inoltre le specie di Bahia classificate come "oppostifoglie" hanno dimostrato evidenti affinità con il genere Picradeniopsis e quindi sono state trasferite in questo genere.[25]
Il cladogramma seguente, tratto dallo studio citato e semplificato, ricavato dall'analisi di alcune specie, descrive l'attuale struttura filogenetica della tribù.[9]
| |||||||||||||||||||||||||||||||||||||||||||||||||||||||
Il cladogramma del "clade Bahia".[26]
| |||||||||||||||||||||||||||||||||||||||||||||||||||||||
I caratteri distintivi delle specie di questa tribù sono:[10]
- molti generi hanno foglie opposte o alterne, carattere utile per distinguere cladi interni;
- ricettacoli privi di pagliette a protezione della base dei fiori;
- le antere pallide o rossastre (non completamente annerite);
- le pareti striate degli acheni;
- le scaglie del pappo ispessite alla base.
Il numero cromosomico di base, per le specie di questa tribù, è: 2n = 38.[10]
Relazioni con altre tribù: Bahieae è strettamente imparentata con Chaenactideae e Tageteae, e formando un complesso con ricettacoli privi di pagliette all'interno dell’Heliantheae alliance.[9]
Composizione della tribù
La tribù Bahieae comprende 20 generi e 86 specie.[10]
| Genere | Nr. specie | Distribuzione | Fiori |
|---|---|---|---|
| Achyropappus Kunth, 1818 | 3 | Messico e Guatemala |  |
| Apostates Lander, 1989 | Una specie: Apostates rapae (F.Br.) Lander, 1989 | Isole Tubuai | |
| Bartlettia A.Gray, 1855 | Una specie: Bartlettia scaposa A.Gray, 1855 | Messico del nord e Texas |  |
| Florestina Cass., 1815 | 8 | USA e America centrale | |
| Chaetymenia Hook. & Arn., 1838 | Una specie: Chaetymenia peduncularis Hook. & Arn., 1838 | Messico |  |
| Chamaechaenactis Rydb., 1906 | Una specie: Chamaechaenactis scaposa Rydb., 1906 | USA centro-meridionali |  |
| Espejoa DC., 1836 | Una specie: Espejoa mexicana DC., 1836 | America centrale | |
| Holoschkuhria H.Rob., 2002 | Una specie: Holoschkuhria tetramera H.Rob., 2002 | Perù | |
| Hymenopappus L'Her., 1788 | 13 | Messico, USA e Canada |  |
| Hymenothrix A.Gray, 1849 | 11 | USA e Messico |  |
| Hypericophyllum Steetz, 1848 | 13 | Africa centrale | |
| Loxothysanus B.L.Rob., 1907 | 2 | Messico | |
| Nothoschkuhria B.G.Baldwin, 2015. | Una specie: Nothoschkuhria degenerica (Kuntze) B.G.Baldwin, 2015 | Argentina e Bolivia | |
| Palafoxia Lag., 1816 | 12 | USA e Messico |  |
| Peucephyllum A.Gray, 1859 | Una specie: Peucephyllum schottii A.Gray, 1859 | USA (sud occidentali) e Messico del nord ovest |  |
| Picradeniopsis Rydb., 1901 | 8 | America del nord e del sud |  |
| Platyschkuhria Rydb., 1906. | Una specie: Platyschkuhria integrifolia (A.Gray) Rydb., 1906 | USA centrali dal Canada al Messico |  |
| Psathyrotopsis Rydb., 1927 | 3 | Messico del nord e Texas |  |
| Schkuhria Roth, 1797 | 2 | America dagli USA all'Argentina |  |
| Thymopsis Benth., 1873 | 2 | Cuba e isole Turks e Caicos | |
Chiave analitica per i generi
Per meglio comprendere ed individuare i vari generi l'elenco seguente utilizza il sistema delle chiavi analitiche:[10]
SEZIONE 1: i capolini hanno una forma discoide (senza raggi) o arrotondata e piatta;
- 1A: la base dello stilo è papillosa; gli stigmi dello stilo sono lunghi quanto o più delle superfici stigmatiche; il rivestimento delle cavità delle antere (endotecio) si presenta con ispessimenti radiali;
- genere Chamaechaenactis
- 1B: la base dello stilo è liscia, senza zone papillose o con tricomi; gli stigmi dello stilo sono privi di appendici, se presenti sono più brevi delle superfici stigmatiche; il rivestimento delle cavità delle antere (endotecio) si presenta con ispessimenti polari;
- 2A: nello stesso capolino le corolle possono essere sia tetramere che pentamere, altrimenti sono tetramere;
- 3A: il pappo è formato da poche scaglie fuse alla base formanti una coppa; i capolini hanno una forma arrotondata e piatta;
- genere Thymopsis
- 3B: il pappo è formato da circa 8 - 10 scaglie libere alla base; i capolini hanno una forma discoide (senza raggi);
- 4A: la lamina della foglia è intera a forma ovata; le antere sono colorate di marrone scuro (o nero);
- genere Holoschkuhria
- 4B: la lamina della foglia è intera, filiforme o lineare o 1-3- pennata; le antere sono colorate da ialino a giallo;
- genere Schkuhria
- 2B: le corolle sono pentamere;
- 5A: le foglie lungo il caule sono disposte in modo opposto;
- 6A: le foglie sono picciolate; le infiorescenze sono del tipo corimboso;
- 7A: la lamina della foglie varia da ovata a trilobata, tri-nervata, con superfici densamente ghiandolari (quella inferiore è densamente pubescente); la distribuzione è relativa al Messico tropicale;
- genere Loxothysanus
- 7B: la lamina della foglie è ampiamente da ovata a ellittica con venature palmate e superficie sparsamente pubescente (non ghiandolosa); le piante di questo gruppo sono endemiche dell'Isola di Pasqua e in genere della Polinesia Francese.
- genere Apostates
- 6B: le foglie sono sessili o brevemente picciolate; i capolini sono solitari o raggruppati in cime panicolate lasse;
- 8A: il pappo è formato da scaglie a forma obovata con prominenti nervature mediane (a volte anche ispessite) e punte uncinate; le corolle possiedono delle piccole gole (approssimativamente 1/5 della lunghezza dei rispettivi lobi); i tubi della corolla sono ispessiti e con basi estese; la distribuzione di queste piante è relativa al Messico e all'America centrale;
- genere Espejoa
- 8B: il pappo è formato da setole capillari o scaglie con una venatura centrale prominente; raramente può essere formato con alternanza di piccole scaglie e setole; l'apice delle setole è uncinato; la gola delle corolle è lunga quanto o più dei rispettivi lobi; il tubo delle corolle non è ispessito e neppure ha delle basi estese; la distribuzione di queste piante è relativa all'Africa tropicale;
- genere Hypericophyllum
- 5B: le foglie sotto l'infiorescenza sono disposte in modo alterno, mentre sono opposte nei nodi basali;
-
- 10A: gli stigmi (o bracci) dello stilo sono acuminati e senza appendici; la superficie abassiale dei bracci dello stilo è rivestita di papille fino al punto di biforcazione;
- genere Palafoxia
- 10B: gli stigmi (o bracci) dello stilo sono fortemente acuminati presso gli apici deltati, e qualche volta sono provvisti di minute (o prominenti) appendici coniche; la superficie abassiale dei bracci dello stilo è rivestita di papille fino al punto distale;
-
- 12A: le corolle sono formate da 5 lobi di cui due sono più lungi degli altri;
- genere Florestina
- 12B: le corolle sono formate da un solo lobo (oppure tutti) di diseguale lunghezza, e qualche volta con una incisione (tra lobo e lobo) più profonda delle altre;
- genere Hymenothrix
- 11B: le corolle sono attinomorfe;
- genere Schkuhria
-
- genere Peucephyllum
- 13B: l'habitus di queste piante è erbaceo con un ciclo biologico annuale o perenne;
- 14A: le corolle hanno dei lobi fortemente incurvati;
- genere Hymenopappus
- 14B: i lobi delle corolle non sono incurvati;
- 15A: le piante si presentano con la maggior parte delle foglie confinate alla base e con infiorescenze scapose; il pappo è formato da setole multiple; le foglie sono intere con una lamina a forma ovata;
- genere Psathyrotopsis
- 15B: le foglie lungo il caule sono distribuite uniformemente e le infiorescenze non sono del tipo scaposo; il pappo è formato con circa 8-10 scaglie dalla forma da obovata a fusiforme; la lamina delle foglie è filiforme;
- genere Schkuhria
SEZIONE 2: i capolini hanno una forma radiata;
- 1A: il colore delle corolle dei fiori sia del disco che del raggio è rosa intenso o purpureo;
- genere Palafoxia
- 1B: il colore delle corolle dei fiori del raggio è bianco, giallo o giallo-arancio, se è rosa allora il colore delle corolle dei fiori del disco è un altro;
-
- 3A: il colore delle corolle dei fiori del raggio è bianco;
- genere Achyropappus
- 3B: il colore delle corolle dei fiori del raggio è giallo;
-
- genere Chaetymenia
- 4B: le foglie lungo il caule sono disposte in modo alterno, qualche volta sono confinate alla base della pianta con infiorescenze sub- scapose;
- 5A: la forma dei frutti acheni è ob-compressa e biconvessa;
- genere Bartlettia
- 5B: la forma dei frutti acheni è da ob-piramidale a fusiforme con 4 – 5 lati;
- 6A: la lamina delle foglie è intera da strettamente ellittica a ovata, oppure sub-orbicolare;
- genere Platyschkuhria
- 6B: la lamina delle foglie è filiforme o lineare del tipo 1-4- pennata;
- 7A: i capolini sono raccolti in cime corimbose scomposte; il pappo è formato da setole capillari multiple;
- genere Hymenothrix
- 7B: i capolini sono solitari o raccolti in cime panicolate lasse; il pappo è formato da scaglie obovate o fusiformi, qualche volta con venature centrali simili alle setole;
- 8A: i capolini sono formati da più di 5 fiori del raggio;
- genere Hymenothrix (ex. Amauriopsis)
- 8B: i capolini sono formati 1 - 3 fiori del raggio (raramente fino a 5);
- genere Schkuhria
- 9A: i lobi delle corolle dei fiori del disco sono fortemente incurvate;
- genere Hymenopappus
- 9B: i lobi delle corolle dei fiori del disco non sono incurvate ma diritte o variamente diffuse;
- 10A: i capolini sono formati da più di 5 fiori del raggio;
- genere Picradeniopsis (ex Bahia)
- 10B: i capolini sono formati 1 - 3 fiori del raggio (raramente fino a 5);
- genere Schkuhria
A questo elenco va aggiunto il genere Nothoschkuhria B.G.Baldwin 2015 recentemente assegnato.
Alcune specie
- Hymenothrix dissecta
 Hymenothrix dissecta (foglie 3-pennate)
- Hymenopappus filifolius
 Palafoxia arida
 Palafoxia arida (foglie)
- Palafoxia callosa
 Palafoxia feayi

 Peucephyllum schottii (habitus)

 Picradeniopsis absinthifolia
Note
- 1 2 (EN) The Angiosperm Phylogeny Group, An update of the Angiosperm Phylogeny Group classification for the ordines and families of flowering plants: APG IV, in Botanical Journal of the Linnean Society, vol. 181, n. 1, 2016, pp. 1–20.
- ↑ Susanna et al. 2020
- ↑ World Checklist, su Royal Botanic Gardens KEW. URL consultato il 14 novembre 2025.
- ↑ eFloras, su Flora of North America. URL consultato il 17 marzo 2012.
- ↑ The International Plant Names Index, su ipni.org. URL consultato il 30 settembre 2014.
- ↑ Pignatti 1982, vol. 3, pag. 1.
- 1 2 Strasburger 2007, pag. 860
- 1 2 Judd 2007, pag. 517
- 1 2 3 4 Funk & Susanna 2009, pag. 696.
- 1 2 3 4 5 6 Kadereit & Jeffrey 2007, pag. 433.
- 1 2 Judd 2007, pag. 520.
- 1 2 (EN) Panero J.L., Phytomelanic Cypsela Clade, su The Tree of Life Web Project. URL consultato il 28 aprile 2011.
- ↑ Strasburger 2007, pag. 858.
- ↑ World Checklist, su Royal Botanic Gardens Kew. URL consultato il 18 aprile 2021.
- ↑ Mandel et al. 2019
- ↑ Zhang et al. 2021
- ↑ Robinson HE, A Revision of the Tribal and Subtribal Limits of the Heliantheae (Asteraceae) (PDF), Washington, Smithsonian Institution Press, 1981.
- ↑ Funk et al., 2009, pag. 185.
- ↑ World Checklist, su Royal Botanic Gardens Kew. URL consultato il 14 novembre 2025.
- ↑ eFloras, su Flora of North America. URL consultato il 17 marzo 2012.
- ↑ eFloras, su Flora of North America. URL consultato il 17 marzo 2012.
- ↑ eFloras, su Flora of North America. URL consultato il 17 marzo 2012.
- ↑ Funk & Susanna 2009, pag. 697
- ↑ World Checklist - Royal Botanic Gardens KEW, su powo.science.kew.org. URL consultato il 14 novembre 2025.
- ↑ Bruce G. Baldwin & Kenneth R. Wood, Origin of the Rapa endemic genus Apostates: Revisiting major disjunctions and evolutionary conservatism in the Bahia alliance (Compositae: Bahieae), in Taxon, vol. 65, n. 5, 2016, pp. 1064-1080.
- ↑ Baldwin et al. 2016.
Bibliografia
- (EN) Kadereit J.W. & Jeffrey C., The Families and Genera of Vascular Plants, Volume VIII. Asterales, Berlin, Heidelberg, 2007.
- (EN) V.A. Funk, A. Susanna, T.F. Steussy & R.J. Bayer, Systematics, Evolution, and Biogeography of Compositae, Vienna, International Association for Plant Taxonomy (IAPT), 2009.
- Judd S.W. et al., Botanica Sistematica - Un approccio filogenetico, Padova, Piccin Nuova Libraria, 2007, ISBN 978-88-299-1824-9.
- Eduard Strasburger, Trattato di Botanica. Volume secondo, Roma, Antonio Delfino Editore, 2007, ISBN 88-7287-344-4.
- Sandro Pignatti, Flora d'Italia, Bologna, Edagricole, 1982, ISBN 88-506-2449-2.
- Sandro Pignatti, Flora d'Italia. Seconda edizione, Bologna, Edagricole, 2018.
- (EN) Alfonso Susanna et al., The classification of the Compositae: A tribute to Vicki Ann Funk (1947–2019), in Taxon, vol. 69, n. 4, 2020, pp. 807-814.
- Giacomo Nicolini, Enciclopedia Botanica Motta, Milano, Federico Motta Editore, 1960.
- (EN) Jennifer R. Mandel, Rebecca B. Dikow, Carolina M. Siniscalchi, Ramhari Thapa, Linda E. Watson and Vicki A. Funk, A fully resolved backbone phylogeny reveals numerous dispersals and explosive diversifications throughout the history of Asteraceae, in PNAS, vol. 116, n. 28, 2019, pp. 14083-14088.
- (EN) Caifei Zhang, Chien-Hsun Huang, Mian Liu, Yi Hu, Jose L. Panero, Federico Luebert, Tiangang Gao, Hong Ma, Phylotranscriptomic insights into Asteraceae diversity, polyploidy, and morphological innovation, in JIPB, vol. 63, n. 7, 2021, pp. 1273-1293.
- (EN) Bruce G. Baldwin, Bridget L. Wessa, Jose L. Panero, Nuclear rDNA Evidence for Major Lineages of Helenioid Heliantheae (Compositae), in Systematic Botany 2002; 27(1): 161-198.
- (EN) Bruce G. Baldwin and Kenneth R. Wood, Origin of the Rapa endemic genus Apostates: Revisiting major disjunctions and evolutionary conservatism in the Bahia alliance (Compositae: Bahieae), in Taxon, vol. 65, n. 5, 2016, pp. 1064-1080.
Voci correlate
Altri progetti
 Wikimedia Commons contiene immagini o altri file su Bahieae
 Wikispecies contiene informazioni su Bahieae
Collegamenti esterni
- Bahieae GRIN Database
- (EN) Phytomelanic_Cypsela_Clade, su The Tree of Life Web Project. URL consultato il 17 marzo 2012.
- (EN) Bahieae, in Universal Protein Resource (UniProt) Taxonomy Database. URL consultato il 17 marzo 2012.